引子
2007年的一天,美国生物学家达斯萨尔马(S. DasSarma)正在窗前思考生命的演化。这几天,他正在为一个看起来非常简单的问题苦恼:树叶为什么是绿色的?
你可能会觉得,不就是因为树叶细胞中负责光合作用的叶绿素是绿色的嘛,这有什么好苦恼的?但达斯萨尔马纠结的是,对于一个光合作用者来说,绿色的外表根本就不合理。在太阳光中,绿光区的光子是最为丰沛的,但这些绿色的树叶却会反射绿光,进而亲手把这份最丰沛的资源集体抛弃。作为演化学家的直觉告诉他,在这简单的问题背后,似乎隐藏着什么不为人知的秘密。
顺着这个思路往下想,一个“理想”的光合作用者应该是什么颜色的呢?或许应该是紫色。毕竟在地面附近,紫光区的光子少得可怜,就算是反射回去了也不心疼。那么,在如今的地球上,真的存在以紫色色素为核心的光合生物吗?
想到这里,达斯萨尔马突然灵光乍现,一副从未有过的壮阔的演化图景在他的脑中徐徐展开。在后续的论文中,他将这个大胆的设想命名为紫色地球假说(Purple Earth hypothesis),而其中那个关键的、紫色的光合生物,也正是这篇文章的主角(之一)——盐杆菌。
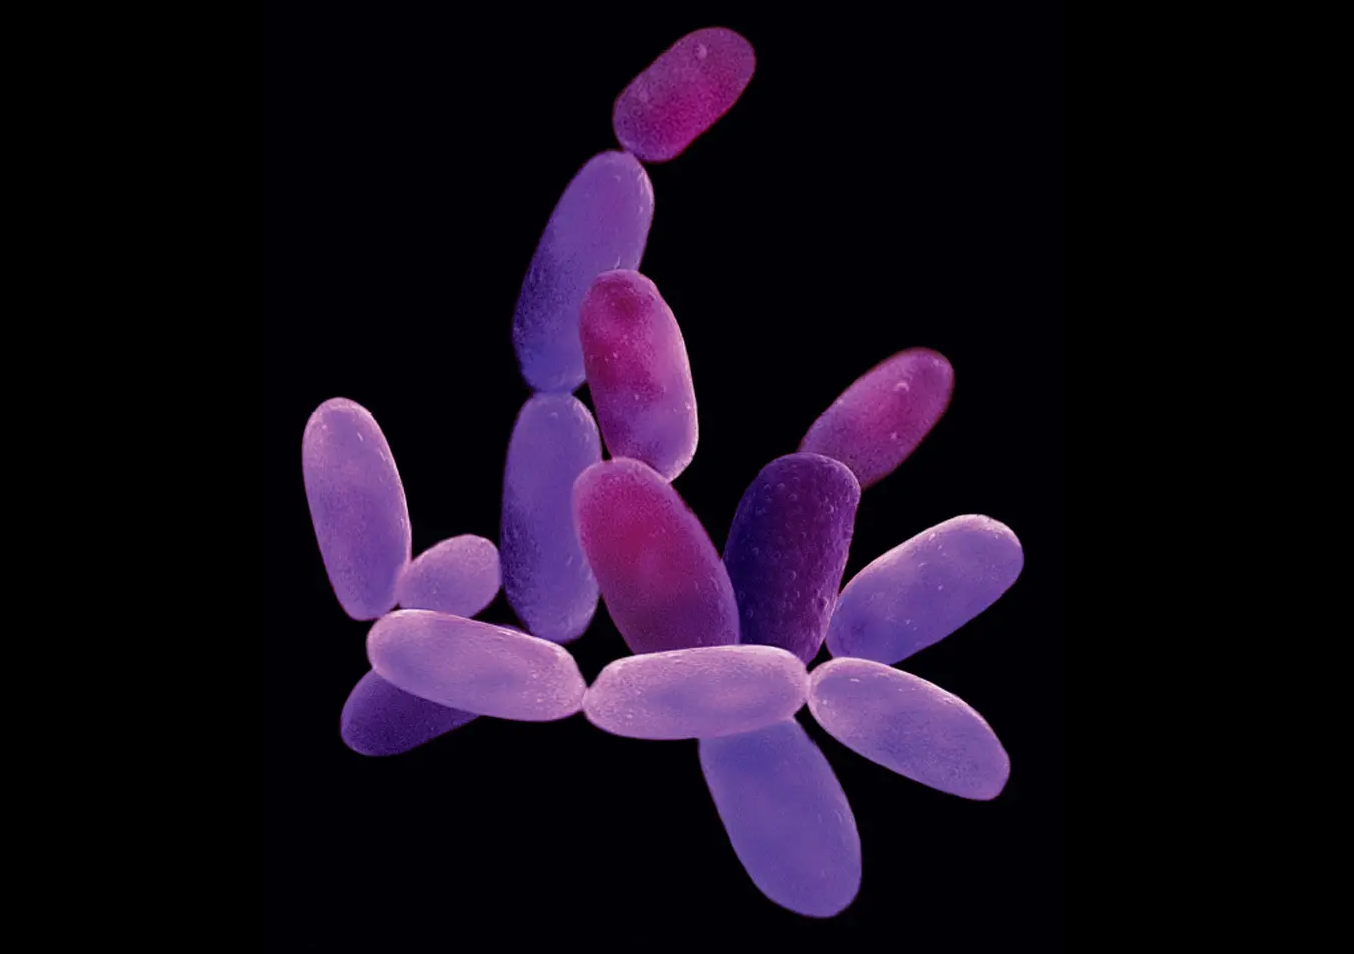
(上图:盐杆菌属某种(Halobacterium sp.),后期染色)
第一篇:紫色地球
故事还得从四十多亿年前讲起。当此之时,地球上已经有了原始的海洋,而早期的分子生命也已在深海热泉口的岩壁之中诞生;在这生命最初的摇篮中,它们享受着火山活动带来的源源不断的物质与能量。但是,生命的贪婪决定了它们不可能一直被困在这温暖的摇篮里。于是,至少有两支族裔都盯上了一类叫脂质的分子,并将运转生命的所有核心部件都打包进了由脂质构成的膜中;就这样,最早的细胞诞生了。很快,它们便各自脱离了岩壁,繁衍出了细胞生物最原初的两大家族:细菌域(Bacteria)和古菌域(Archaea)。
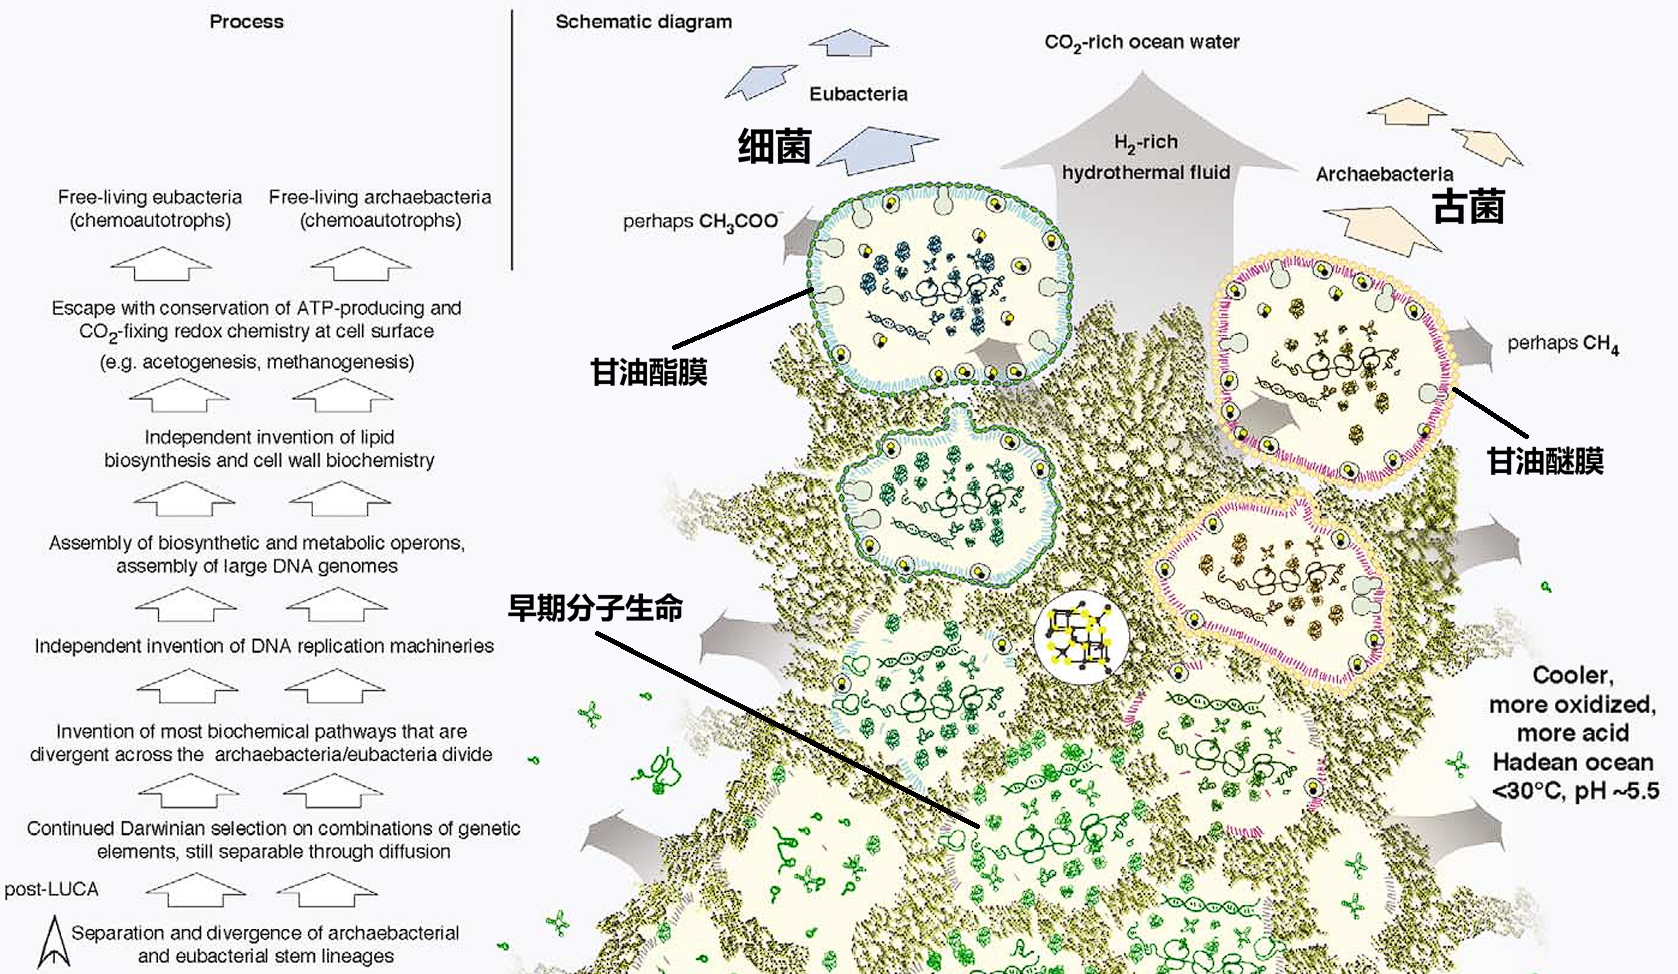
(上图:推定的从分子生命到细胞生命的演变,基于Koonin et al., 2005)
对于早期的细胞生命来说,虽然它们获得了自由,但能量的供应却变得捉襟见肘。于是,古菌的祖先想出了个绝妙的点子。它发现,在深海的热液环境中,诸如氢气这样的还原性物质非常丰富,于是它利用这些物质将二氧化碳还原为甲烷,并从中汲取运转生命的能量。这套代谢系统被称作沃尔夫循环(Wolfe cycle),而它的出现,代表了最早的产甲烷菌登上了历史舞台:
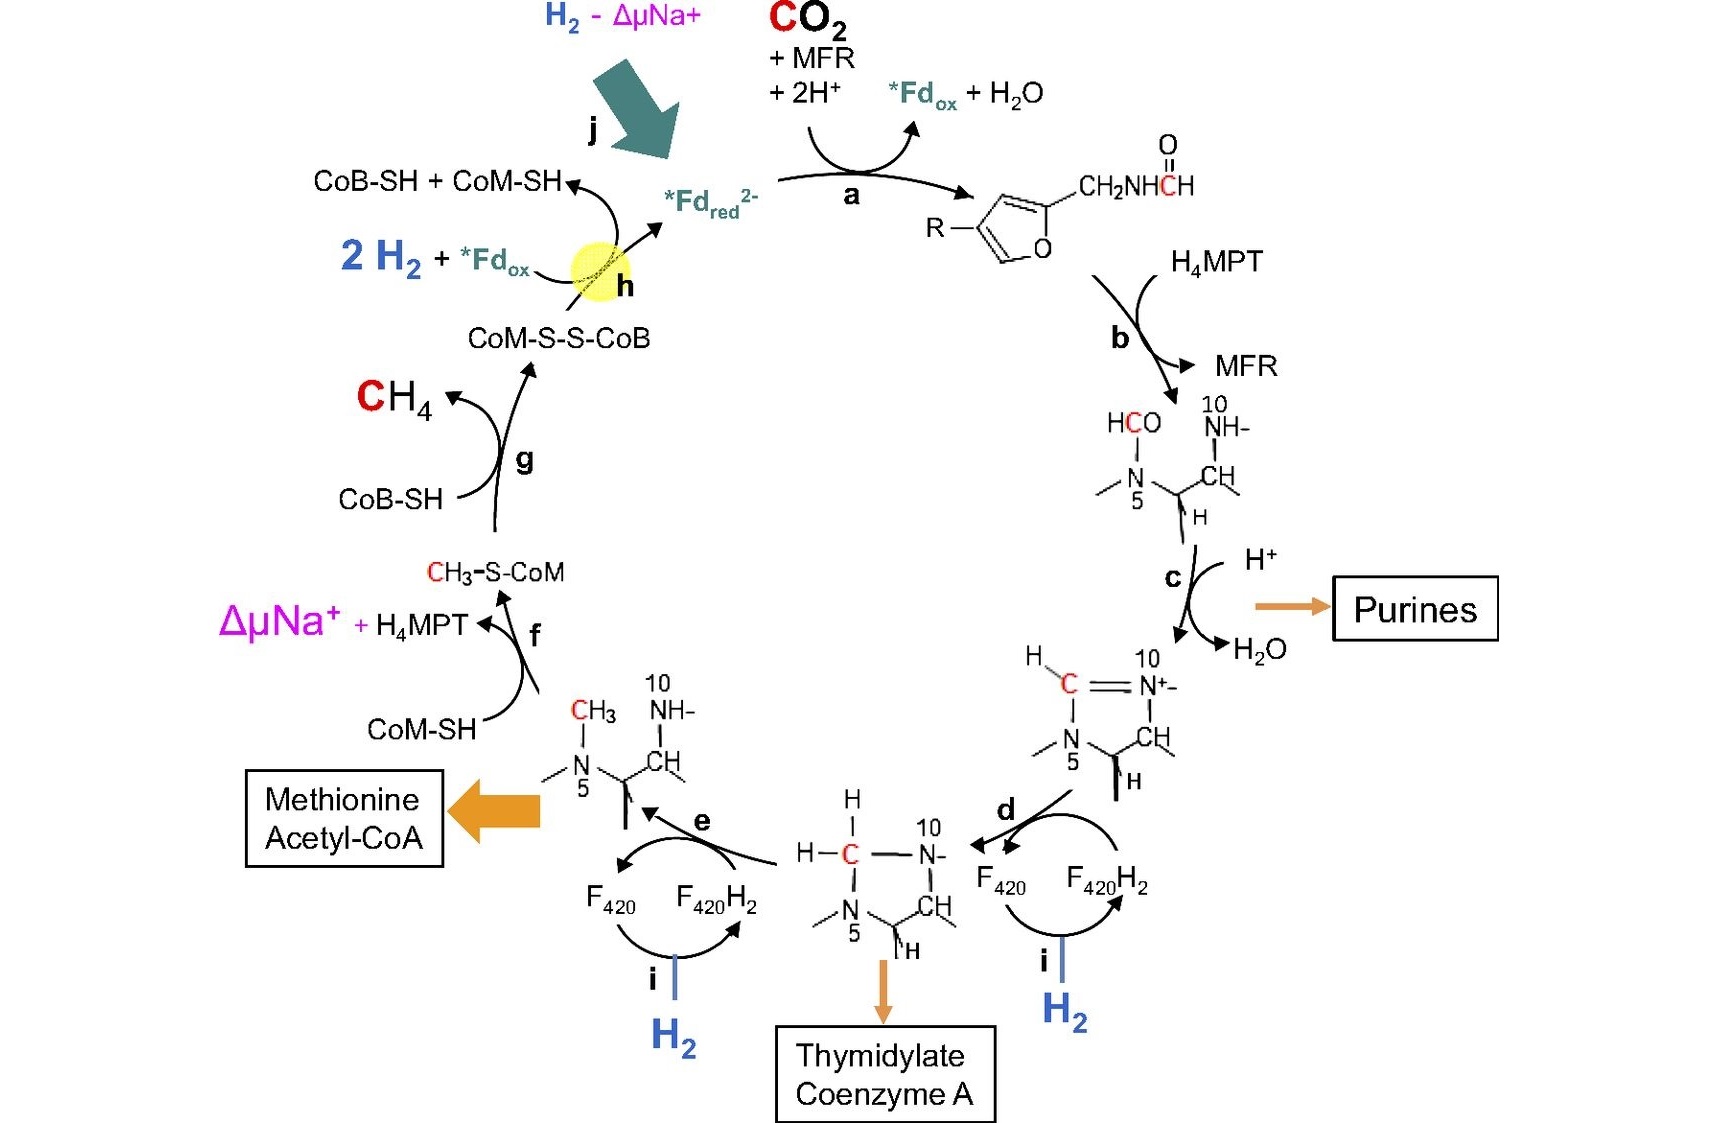
(上图:沃尔夫循环的示意)
作为已知最古老的产能途径之一,沃尔夫循环的效率非常低下,平均每生成一分子甲烷产出的能量只有约半个ATP分子;不过,在那个洪荒的地球上,它已经足以让古菌占尽先机。很快,一支几乎完全继承了祖先意志的古菌谱系脱颖而出,也就是著名的广古菌界(Euryarchaeota)。自诞生之时起,该类群便一直是地球上甲烷生成的主力,即便到了今日,虽然地球环境已经沧海桑田,但它们依旧广泛地存在于各种缺氧环境中,延续着几十亿年的祖宗之法:
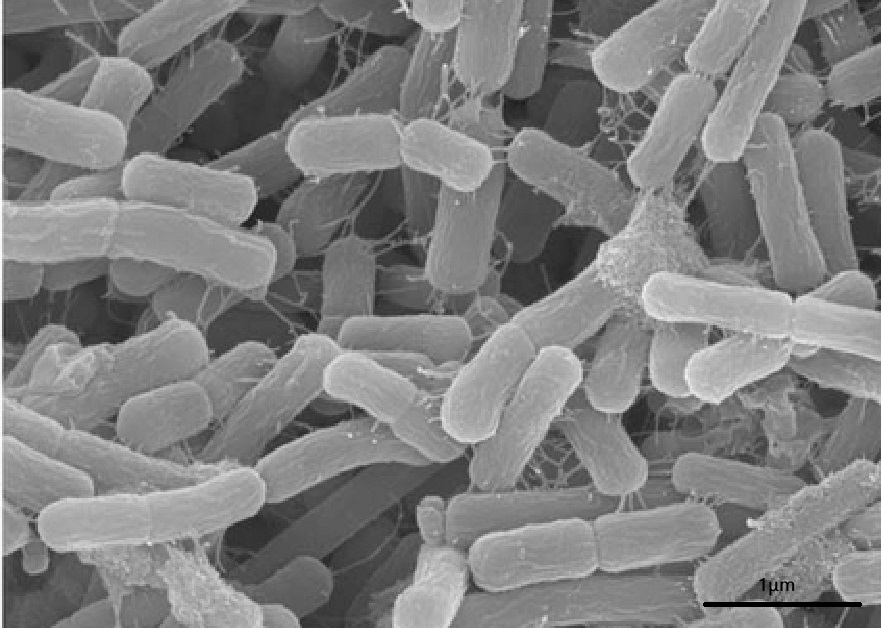
(上图:甲酸甲烷杆菌(Methanobacterium formicicum),最常见的产甲烷菌之一,也是甲烷杆菌属的模式种)
但是,在这一大家子中,却也出现了好几个反骨仔。或许是因为产甲烷菌的生态位日益拥挤,使得它们不约而同地做出了一个违背祖宗的决定:退化沃尔夫循环,去其他生态位寻找出路。比如著名的铁原体(Ferroplasma),能通过氧化低价态金属离子获取能量;为了适应恶劣的环境,它还退化了自己的细胞壁,并练就了一身耐热、耐酸的本领,以至于如今被狡猾的人类用来处理矿山的废水:
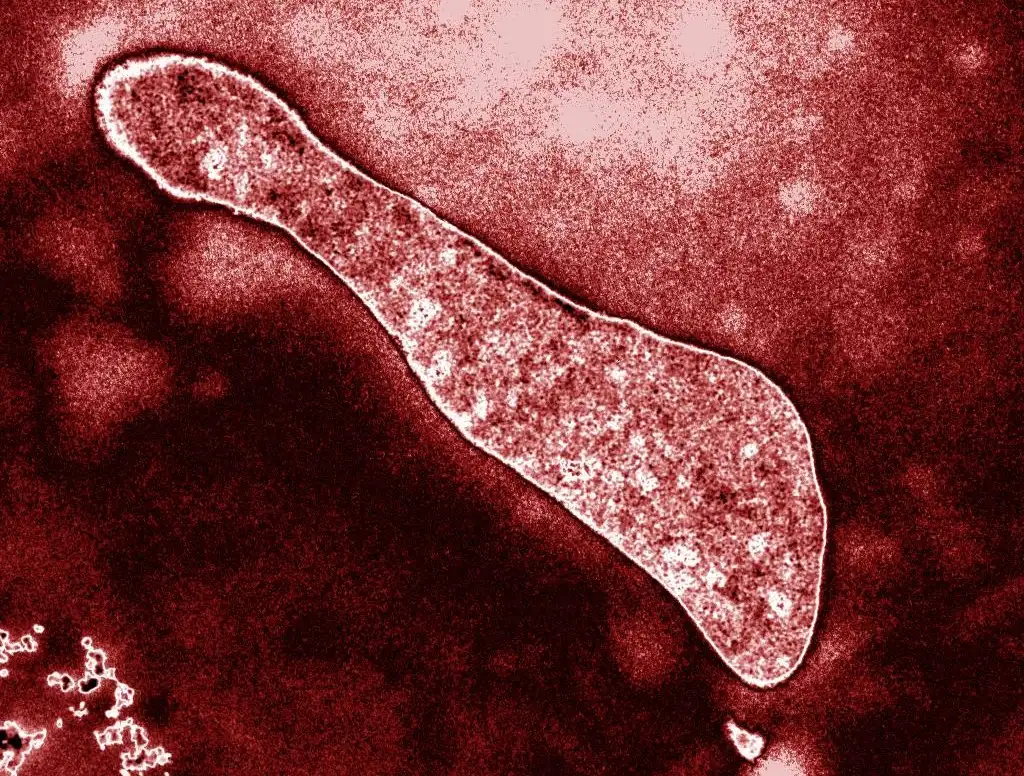
(上图:嗜酸铁原体(Ferroplasma acidiphilum))
不过,要说这群逆贼中混的最好的,可能还得是我们的主角——盐杆菌纲(Halobacteria)。之所以这么说,是因为它们超越了化能合成的生活方式,真正走上了一条未曾设想的道路。
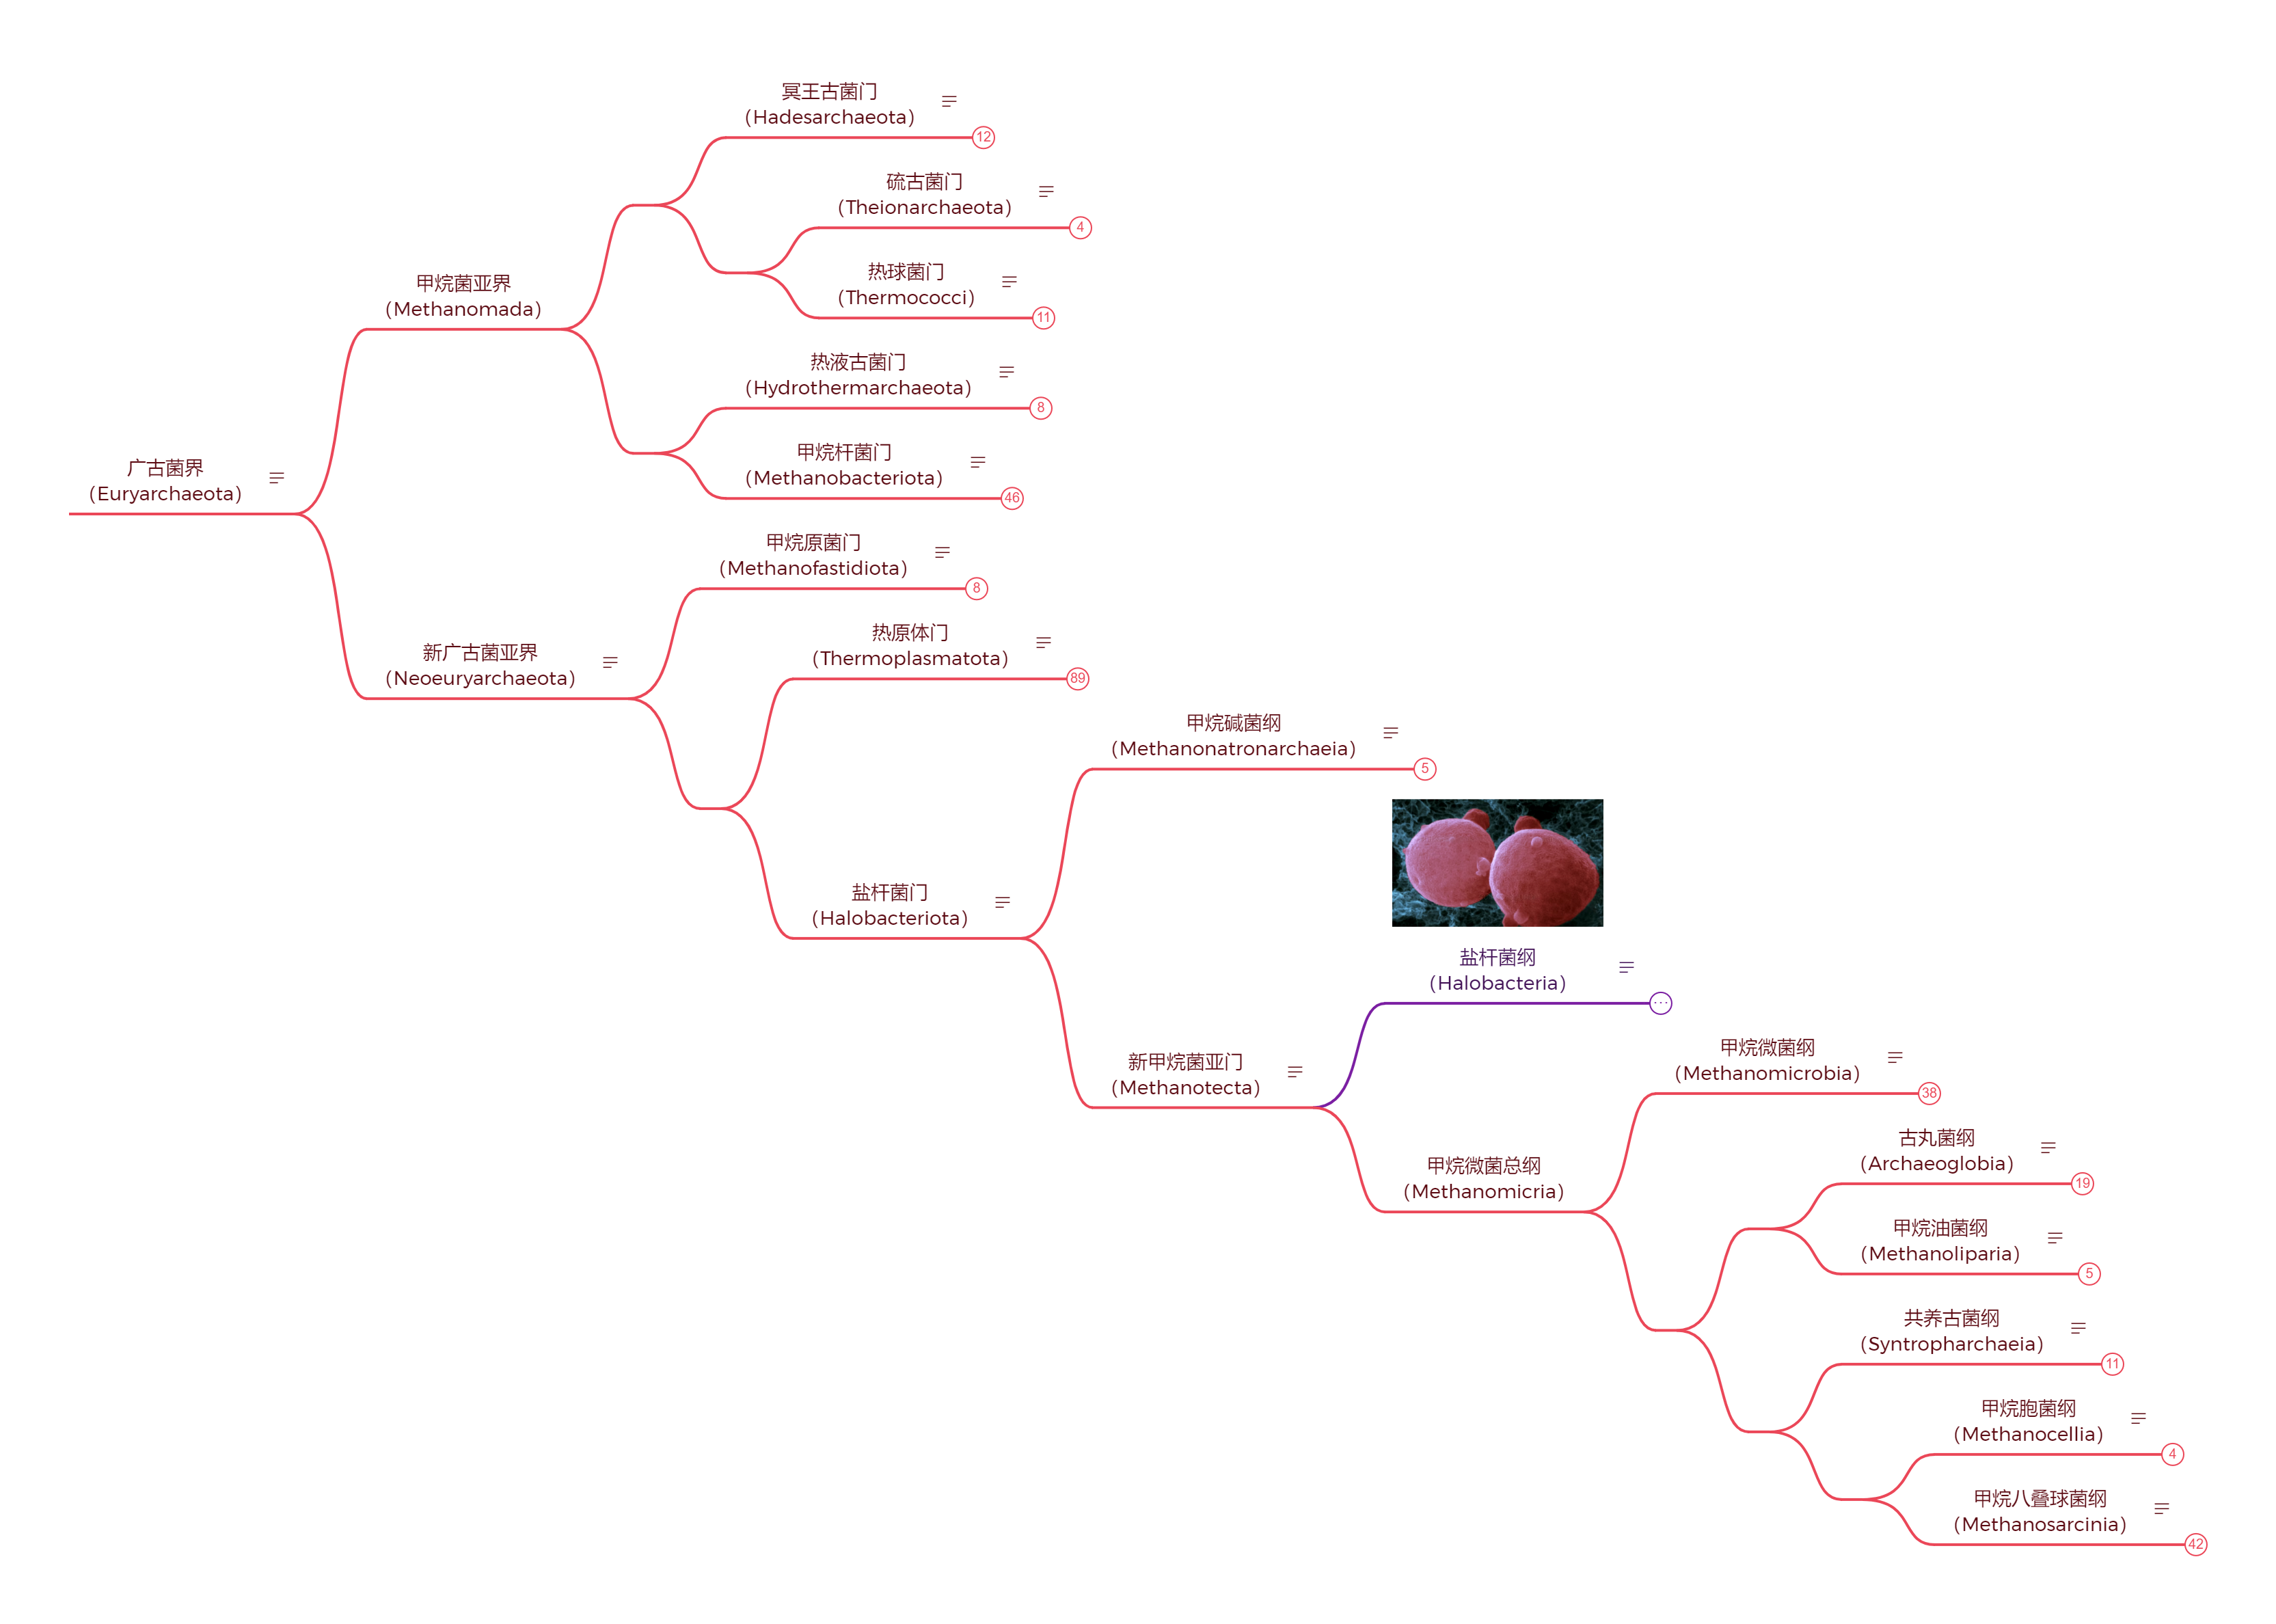
(上图:盐杆菌纲在广古菌中的演化位置;一般认为,它与铁原体所在的热原体类(Thermoplasmata)共同属于新广古菌亚界(Neoeuryarchaeota),是广古菌界的两大分支之一)
#
大约35亿年前,当盐杆菌的祖先迁徙到海洋表层时,它看到的可能是一片空无一物的海域。相比于拥挤的海底,这里无论是生物还是生命必须的物质都相当稀疏;它知道,如果想要在这种地方生存下去,就必须抛弃原先所熟悉的一切。或许就是在这样的契机下,它的后代退化了祖传的产甲烷能力,并望向了空中那个似乎永远不会熄灭的能量源——太阳。
为了利用阳光,盐杆菌注意到了一种不起眼的小分子——视黄醛(Retinal)。这种物质最初可能只是异戊二烯途径的一种副产物,但其中的共轭双键结构使得它可以被光激发,转变成一种高能量的不稳定状态(主要涉及双键顺反构型的翻转);在此后回归基态的过程中,这一能量会被分成好几份缓慢释放,这便给了生物利用这些能量的空间:
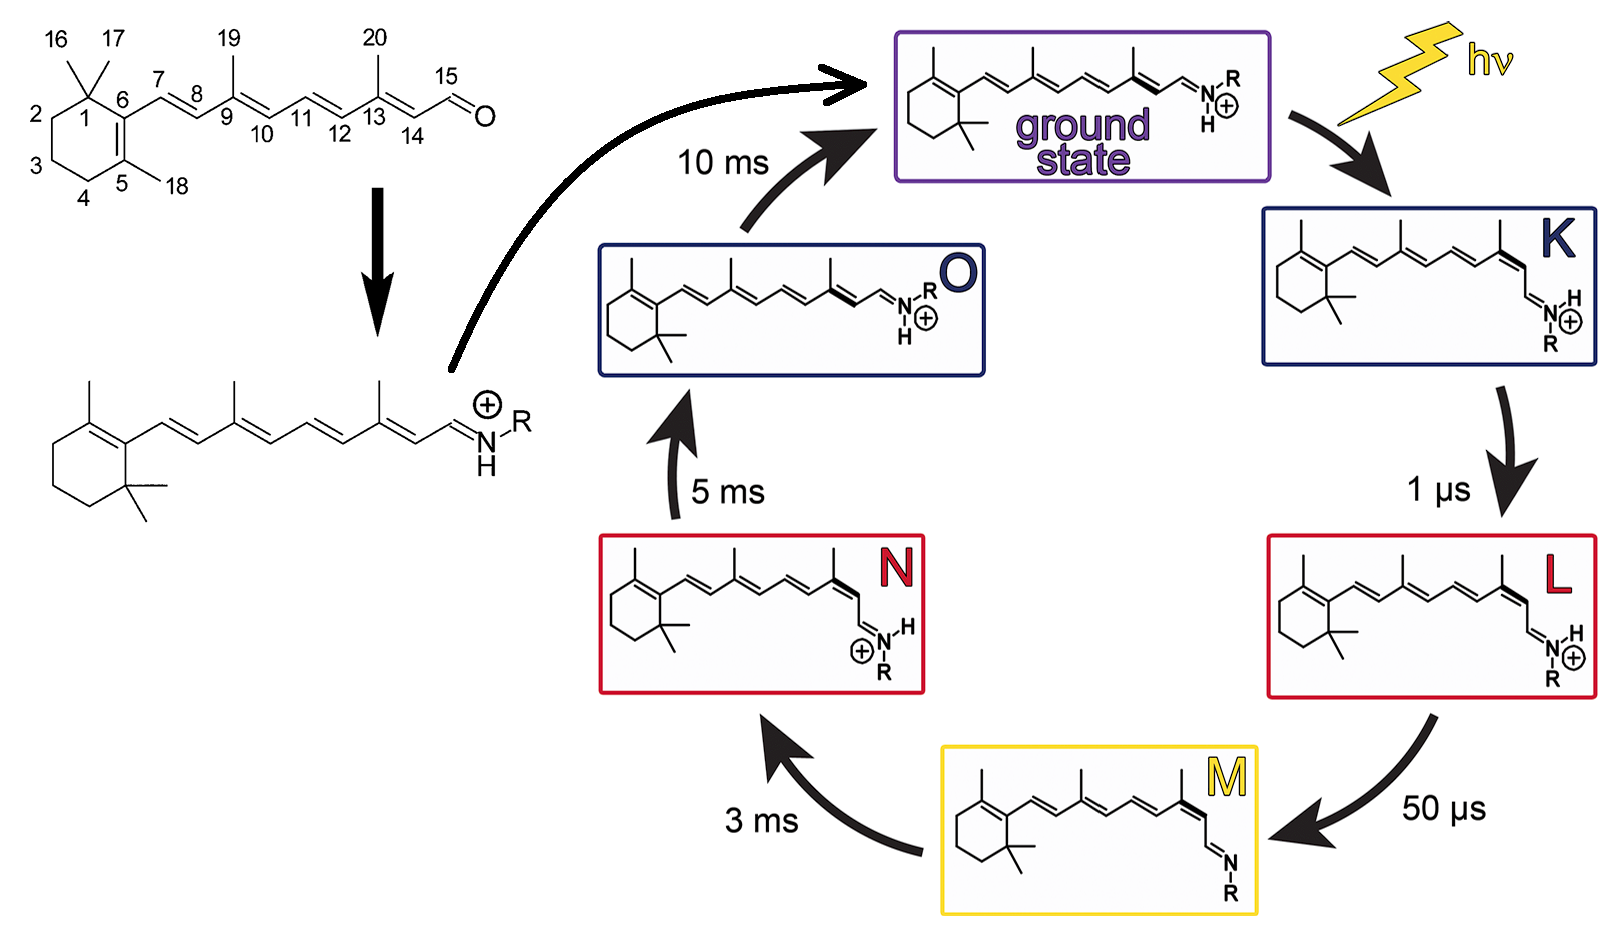
(上图:视黄醛及其衍生物光循环的一个简化示例)
于是,在漫长的演化中,有一支盐杆菌学会了将视黄醛与某种质子泵蛋白偶联,从而利用视黄醛捕获的光能将质子转运到细胞外。由此一来,细胞质就能维持偏碱性,进而使得胞外的质子会自发地经过ATP合成酶流入胞内,并驱动其运转。就这样,阳光变成了生命可以直接利用的能量货币,所谓光合作用也自此初具雏形:
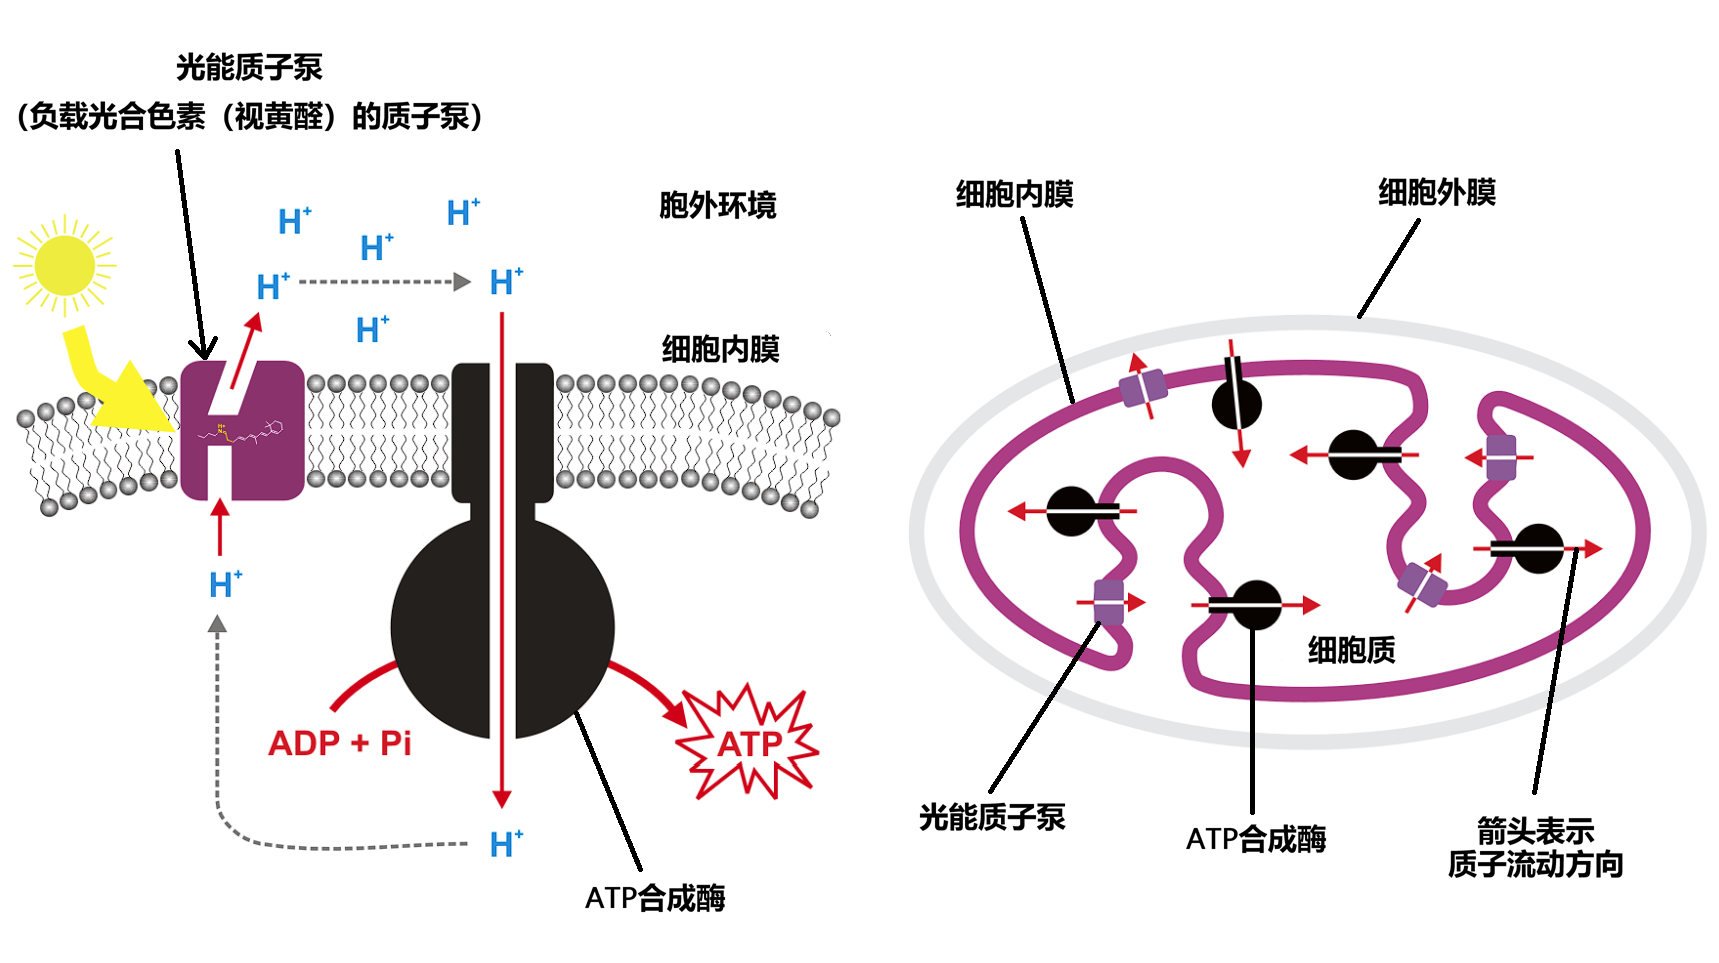
(上图:盐杆菌的光营养原理模型;其中的光能质子泵通称紫膜质(bacteriorhodopsin))
在那个上古世界,拥有了阳光,便拥有了一切。于是,这支拥抱光明的先行者当仁不让地壮大了起来,进而占领了所有阳光下的土地。由于负载了视黄醛的蛋白会强烈吸收阳光中最丰沛的绿光,所以盐杆菌通常都呈现出艳丽的紫红色;因此,当时的整个地球或许都被它们染成了一个紫色的世界,这也正是紫色地球假说的本意:
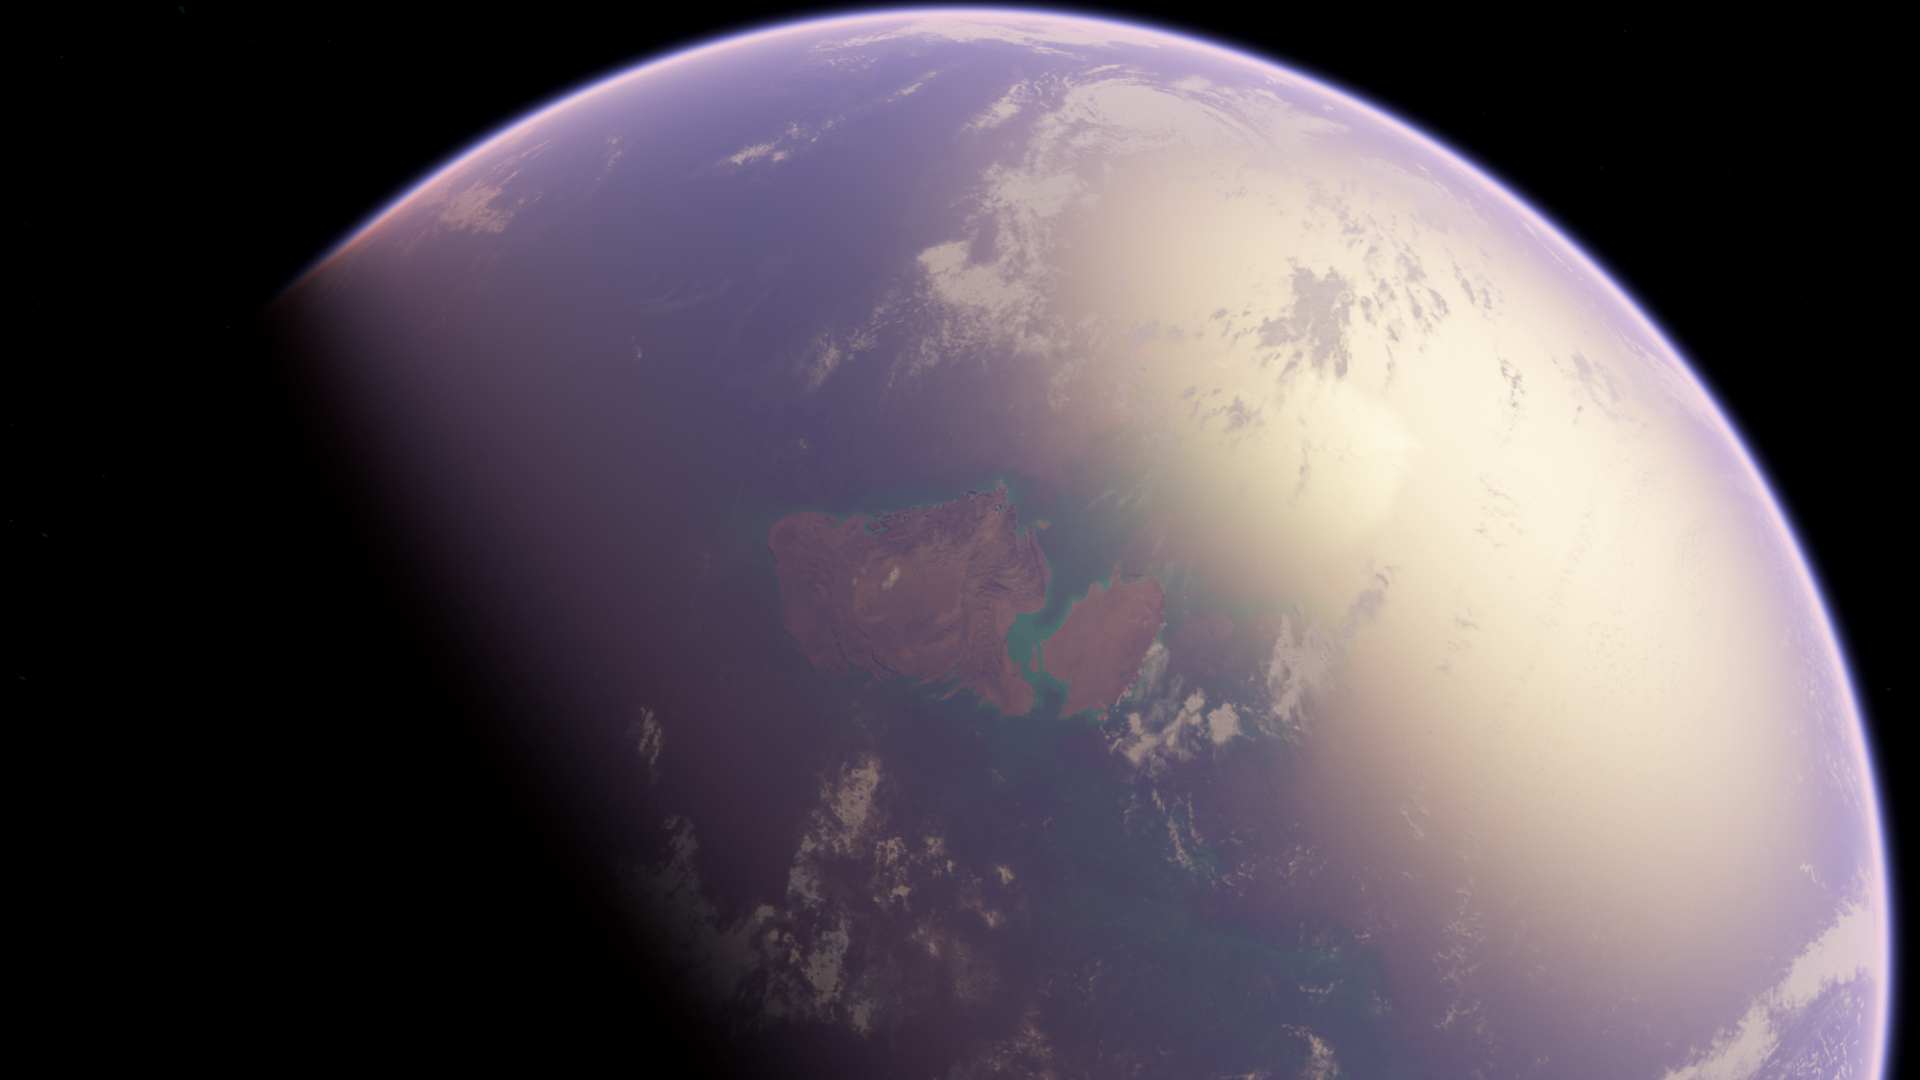
(上图:艺术家对紫色地球的想象)
想象一下吧,在那个仍处于太古宙的地球上,紫色的海洋无边无际,只有一些零星的岛屿露出水面;而在这仅有的陆地上,厚重的紫色菌毯也延伸到了每一个角落。它们贪婪地吮吸着和煦的阳光,利用它的力量肆意地生长,并与那些依附于它们的微生物一起,形成了一个全新的、依赖太阳而非深海热泉的生态系统。没有什么理由强大到足以摧毁它,这个由盐杆菌一手缔造的、美丽的紫色帝国似乎将一直存在下去,直到岁月的终点。
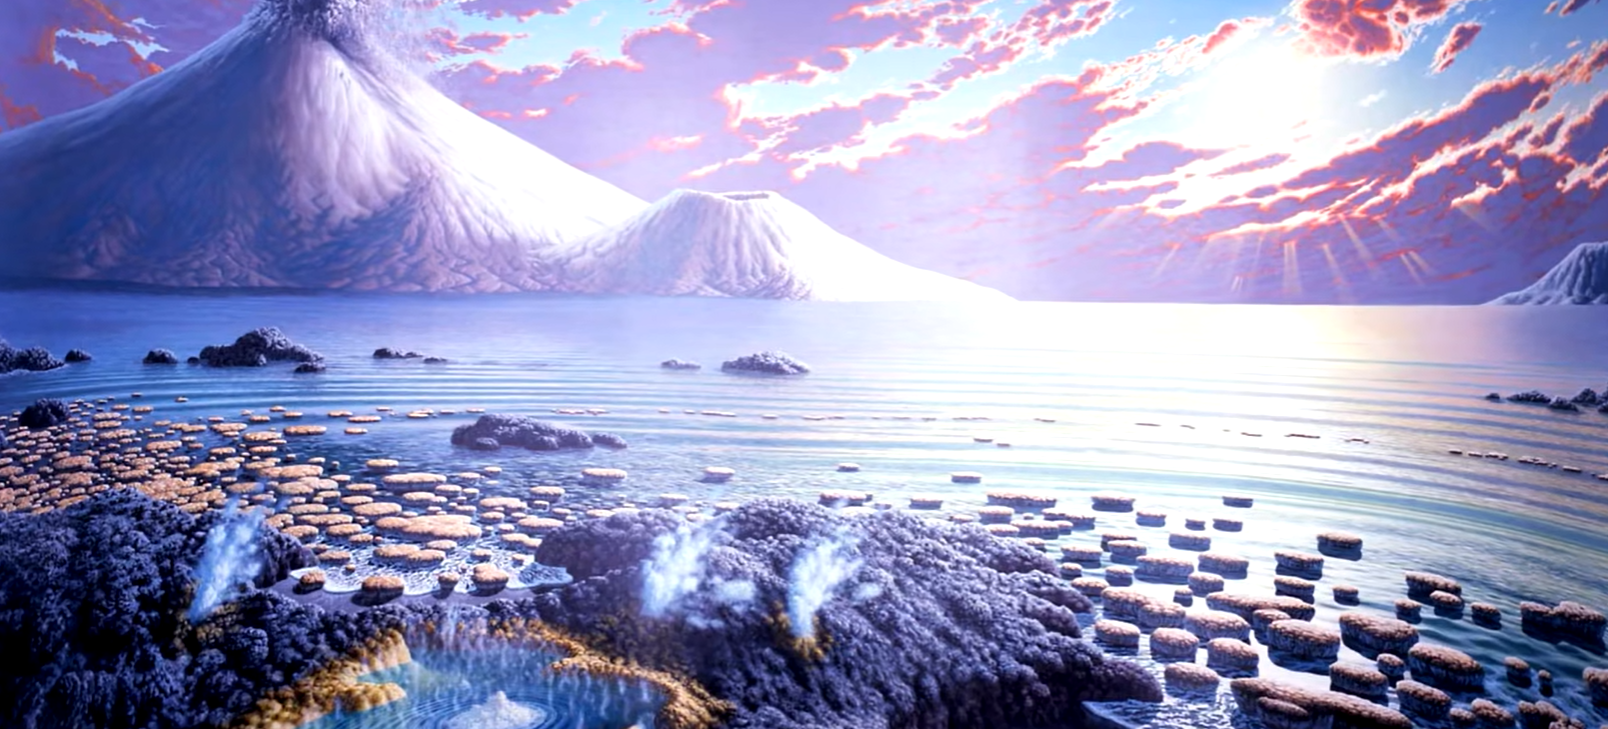
(上图:艺术家对紫色地球的想象)
它们此时显然还并不知道,演化的大手会把它们推向何方。
第二篇:蓝细菌
越来越多的证据表明,有氧呼吸的起源比产氧光合作用早得多。有一种假说认为,世界上第一批好氧的细菌可能和当年最初的生命一样,是从岩缝里蹦出来的。或许在当时的地球上,有许多微生物会在海浪的席卷下,被囚禁到岸边岩石的缝隙中;在这种鬼地方,营养的匮乏自不必多说,但更大的杀机还潜伏在看不见的角落。岩石中蕴含的放射性元素会发出辐射,而这种辐射足以摧毁水分子中那牢不可破的氢氧键,并导致过氧化氢甚至氧气的产生:
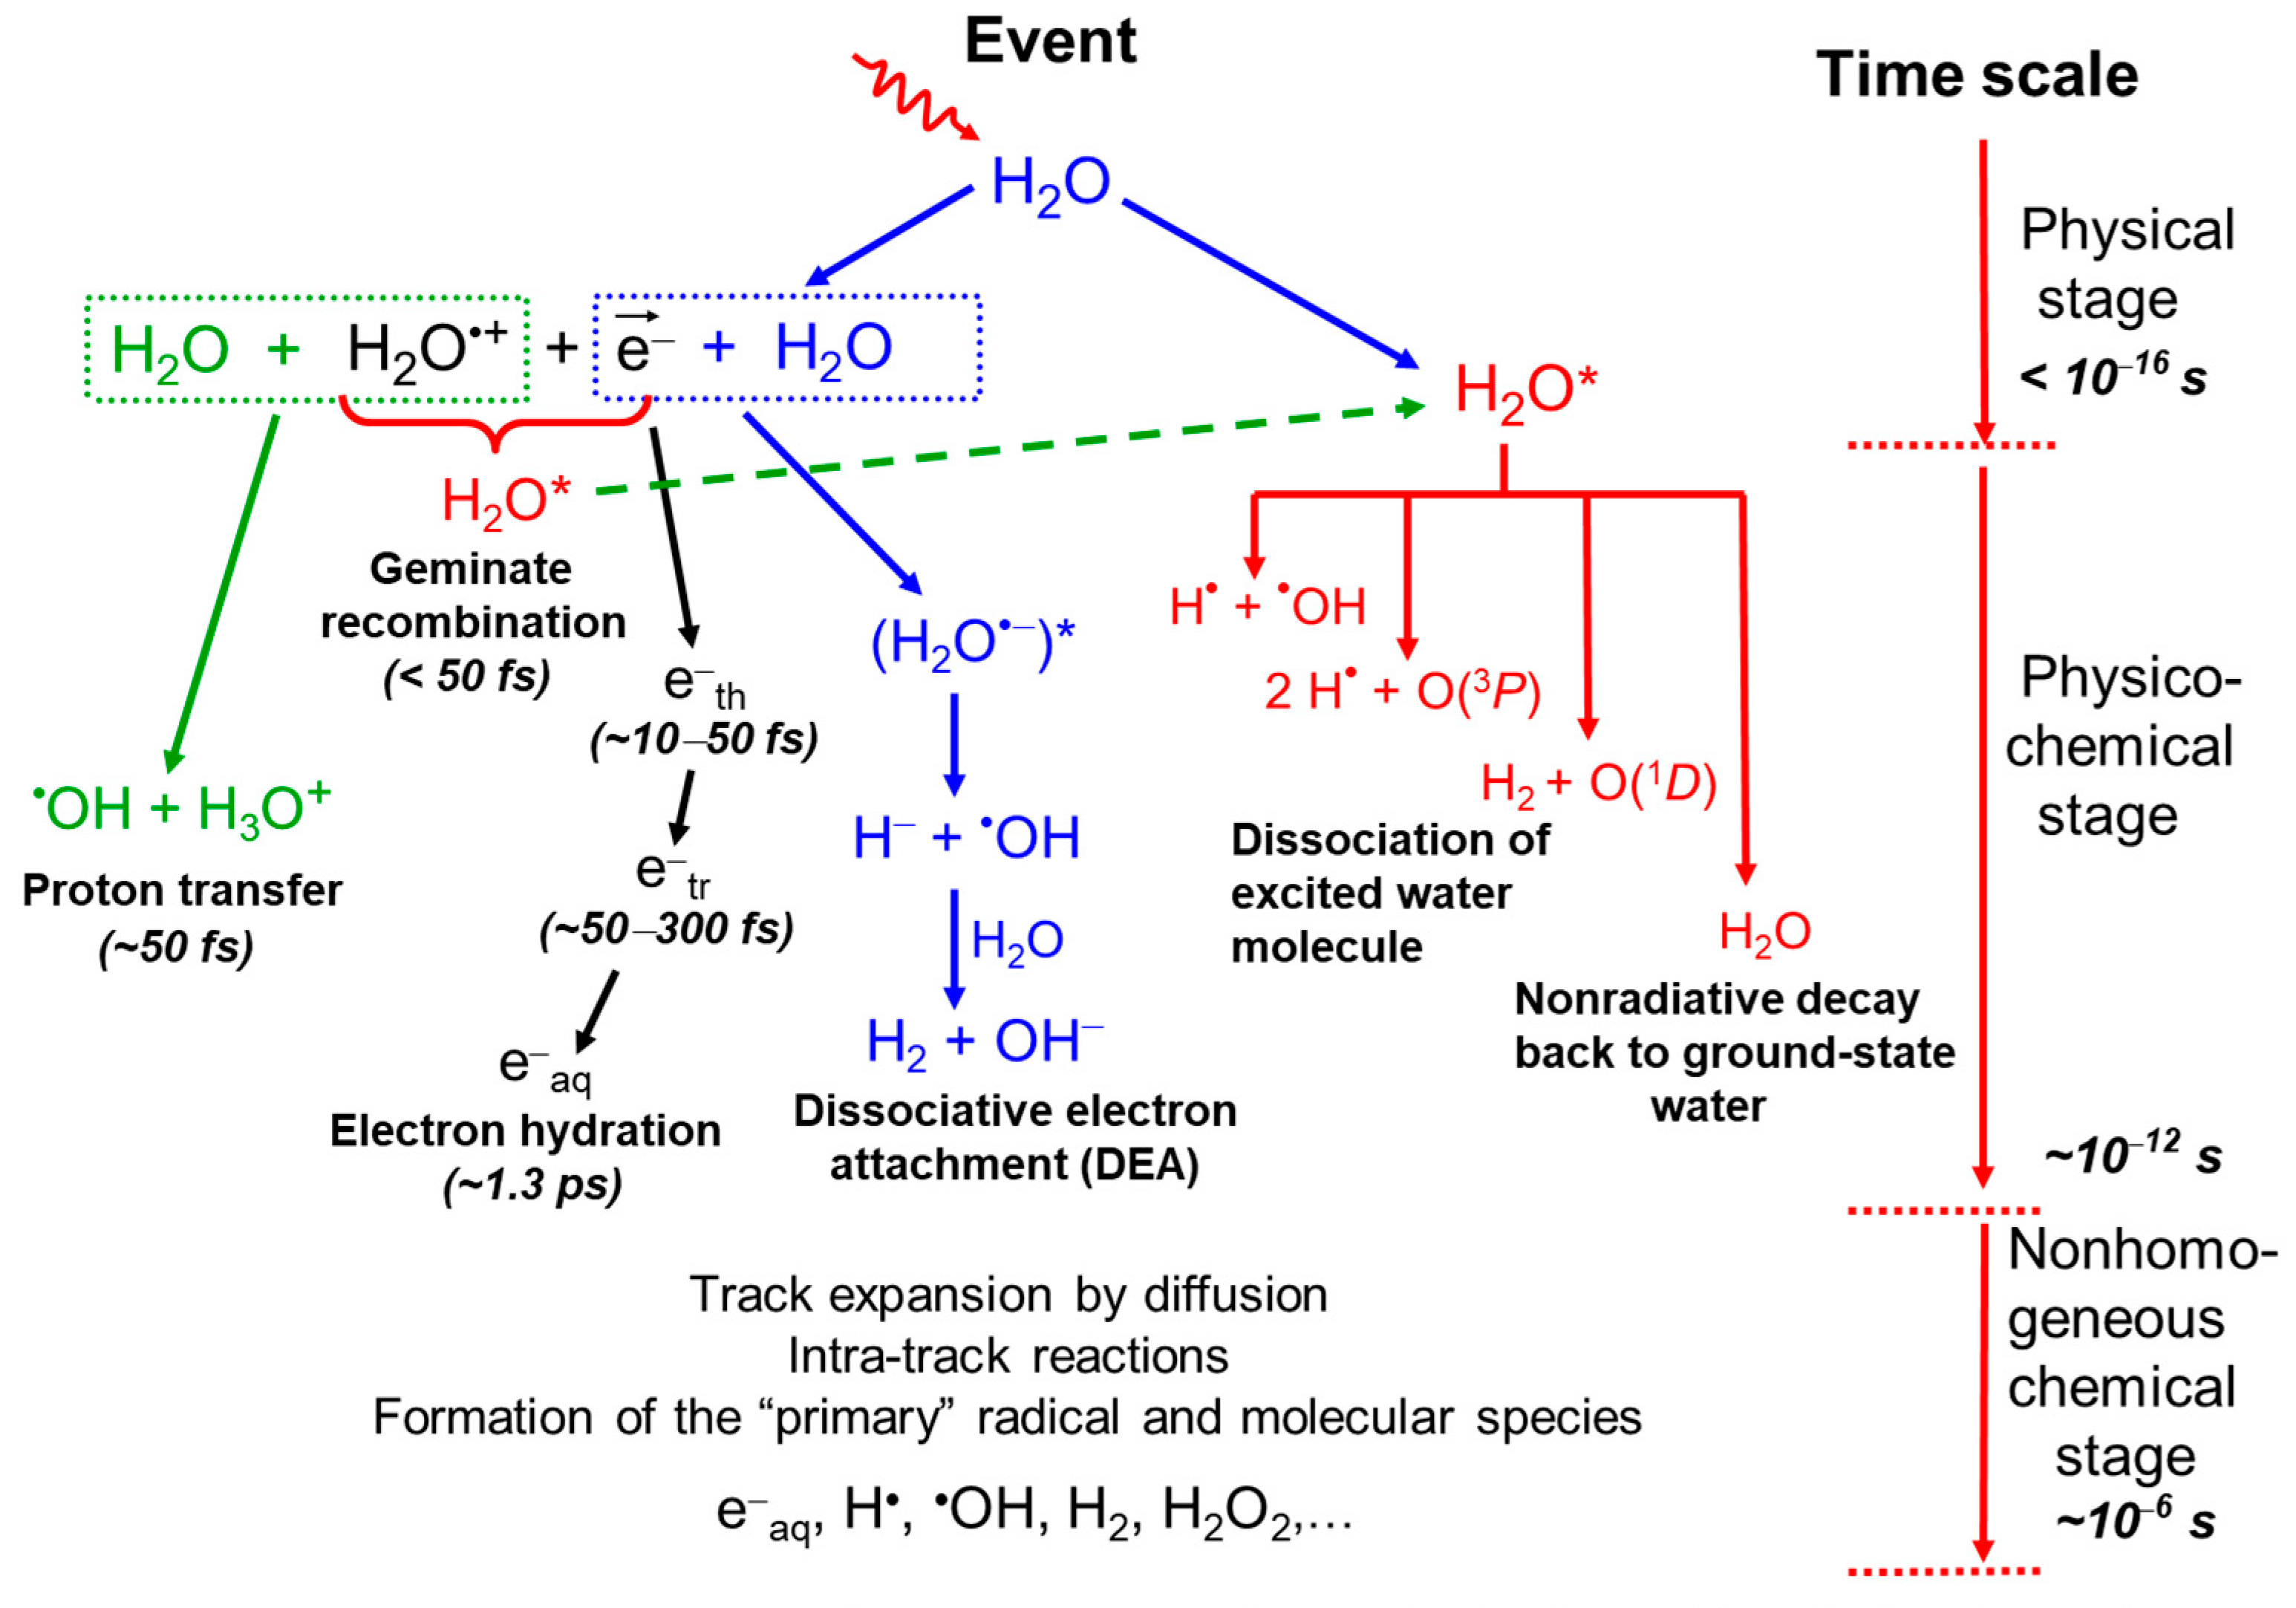
(上图:水的辐解)
对于当时的生命而言,这些物质无疑是致命的;很快,岩缝中就堆满了各种微生物的累累尸骸。但是,在大约33亿年前的某一天,有一种细菌竟在无数同类的尸山血海之上,奇迹般地演化出了一套对抗氧气的系统。甚至于,它的一支后代还学会了化砒霜为蜜糖,利用氧气来代谢有机物,进而获取到了对于厌氧菌而言难以想象的巨大能量。今天的我们称这套系统为有氧呼吸,而那个率先演化出有氧呼吸的类群,正是蓝细菌门(Cyanobacteriota)。
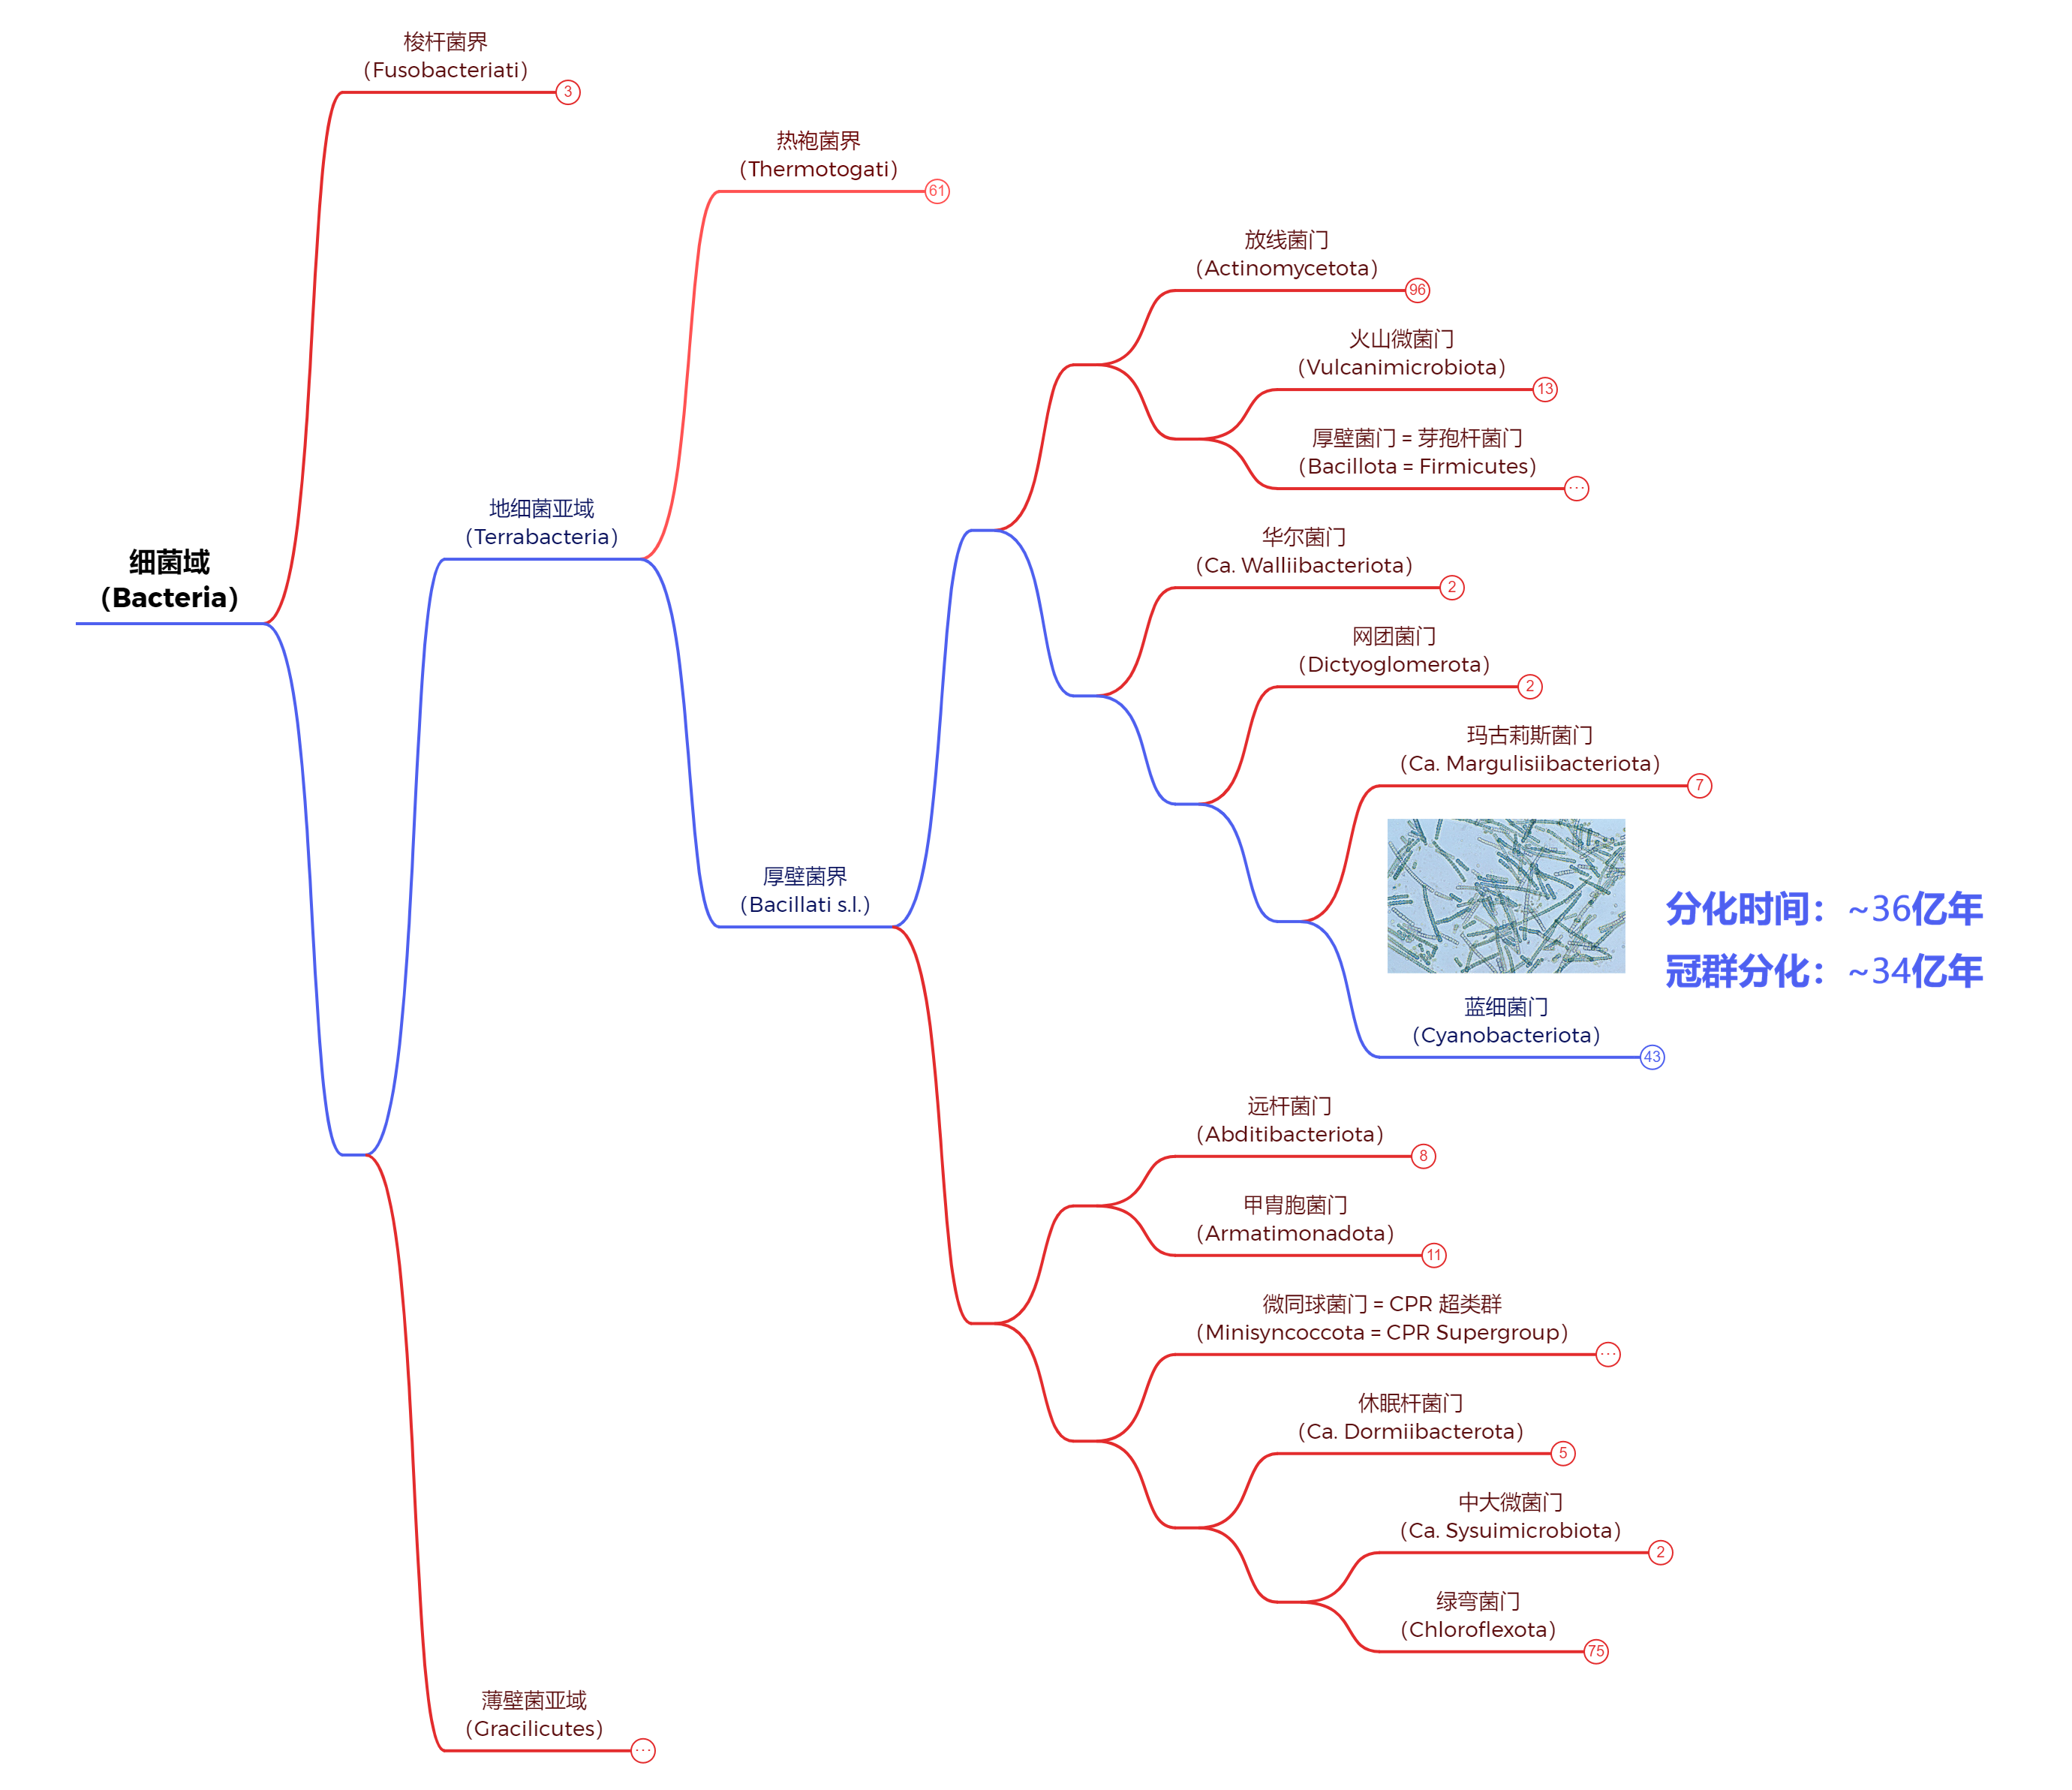
(上图:蓝细菌门(蓝色标注)在细菌域中的系统发育位置;对分类学在意的读者需注意,本文对蓝细菌门和厚壁菌界取广义,这点在下文中不会再次说明)
早期蓝细菌门的成员可能类似于今天的吸血弧菌纲(Vampirovibrionophyceae),它们虽然好氧,但不会光合作用。这个类群中最出名的吸血弧菌(V. chlorellavorus)营寄生生活,其猎物是一类名叫小球藻(Chlorella)的单细胞绿藻。在附着到宿主的细胞表面后,这货会像蚊子一样伸出一根“吸管”,把宿主的细胞膜捅破,最终将整个细胞吸成一具空壳:
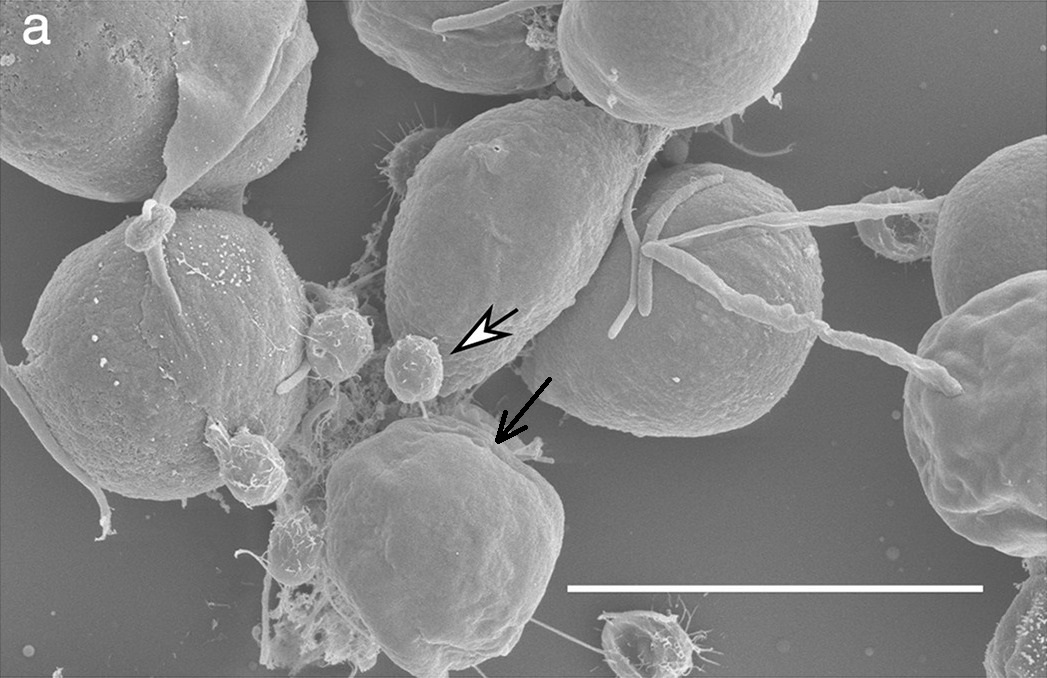
(上图:小球藻(黑色箭头)和附着于其上的吸血弧菌(白色箭头);比例尺:5μm)
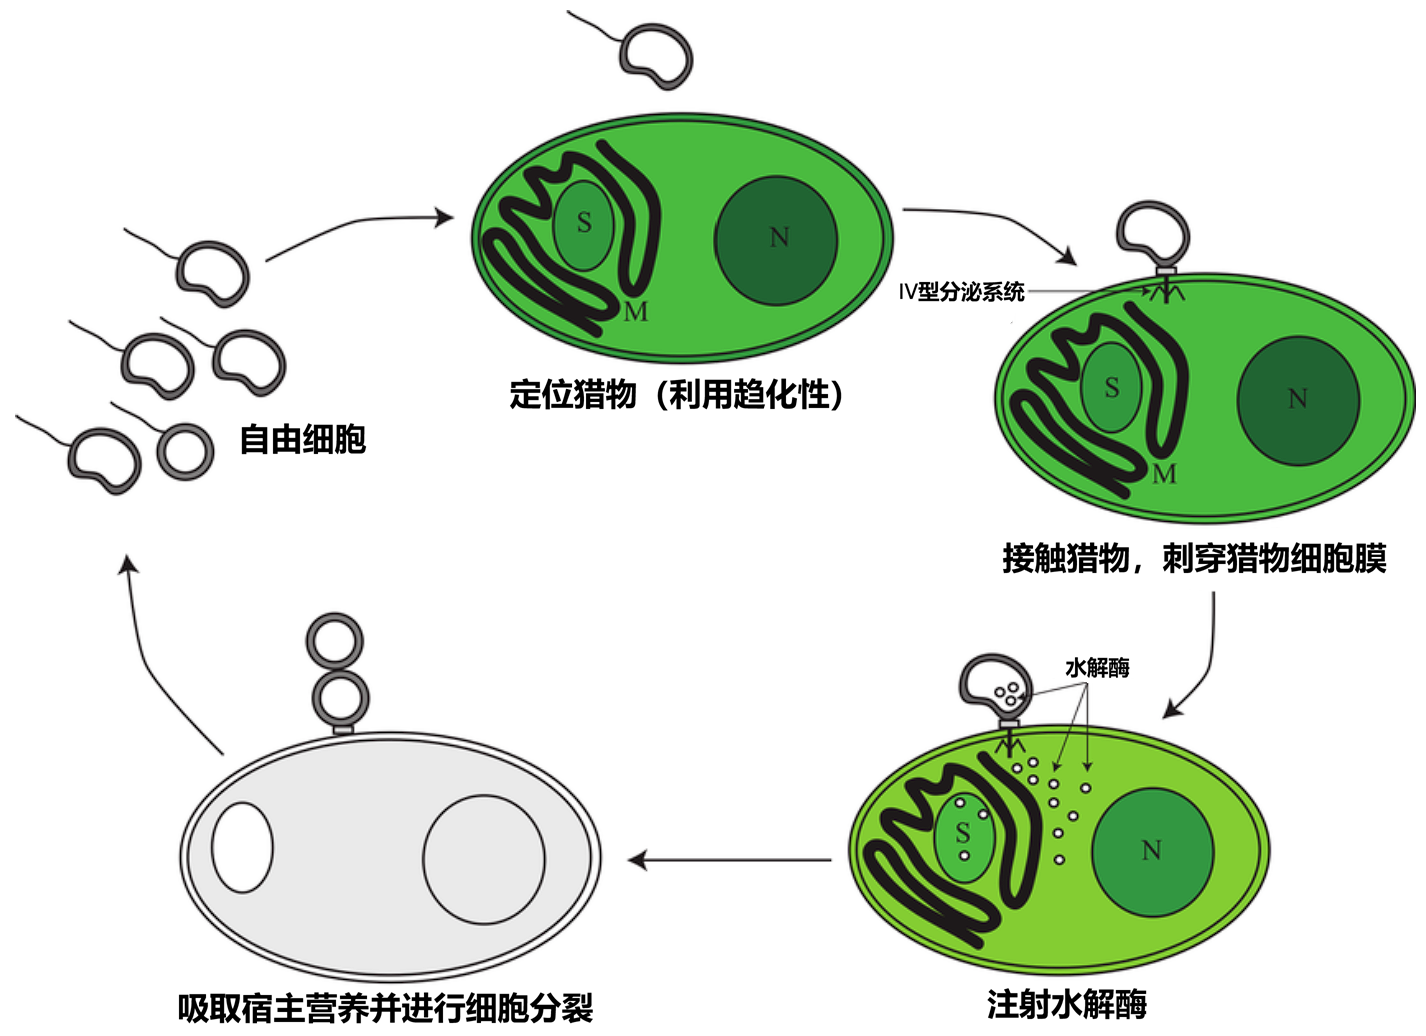
(上图:吸血弧菌的生命周期,翻译自论文原图)
好吧,虽然这种转向寄生的东西看起来很不争气,但蓝细菌门的其他类群并没有像它一样走上邪路。相反,走出石穴的它们同样将目光投向了天空中,那个亘古不熄的能量源——太阳。
你可能会想,当时的整个地球表面都已经被盐杆菌占领,那新生的蓝细菌要怎么争夺这宝贵的阳光呢?答案是暂居人下,权且忍让。事实上,由于不同生物之间的代谢通常是互补的,所以原核生物很早就发展出了共生的生活方式;它们形成的菌毯也经常呈现出层状结构,每一层都由不同的微生物类群主导(表现为每一层都有不同的颜色),大家各取所需,彼此之间相濡以沫:
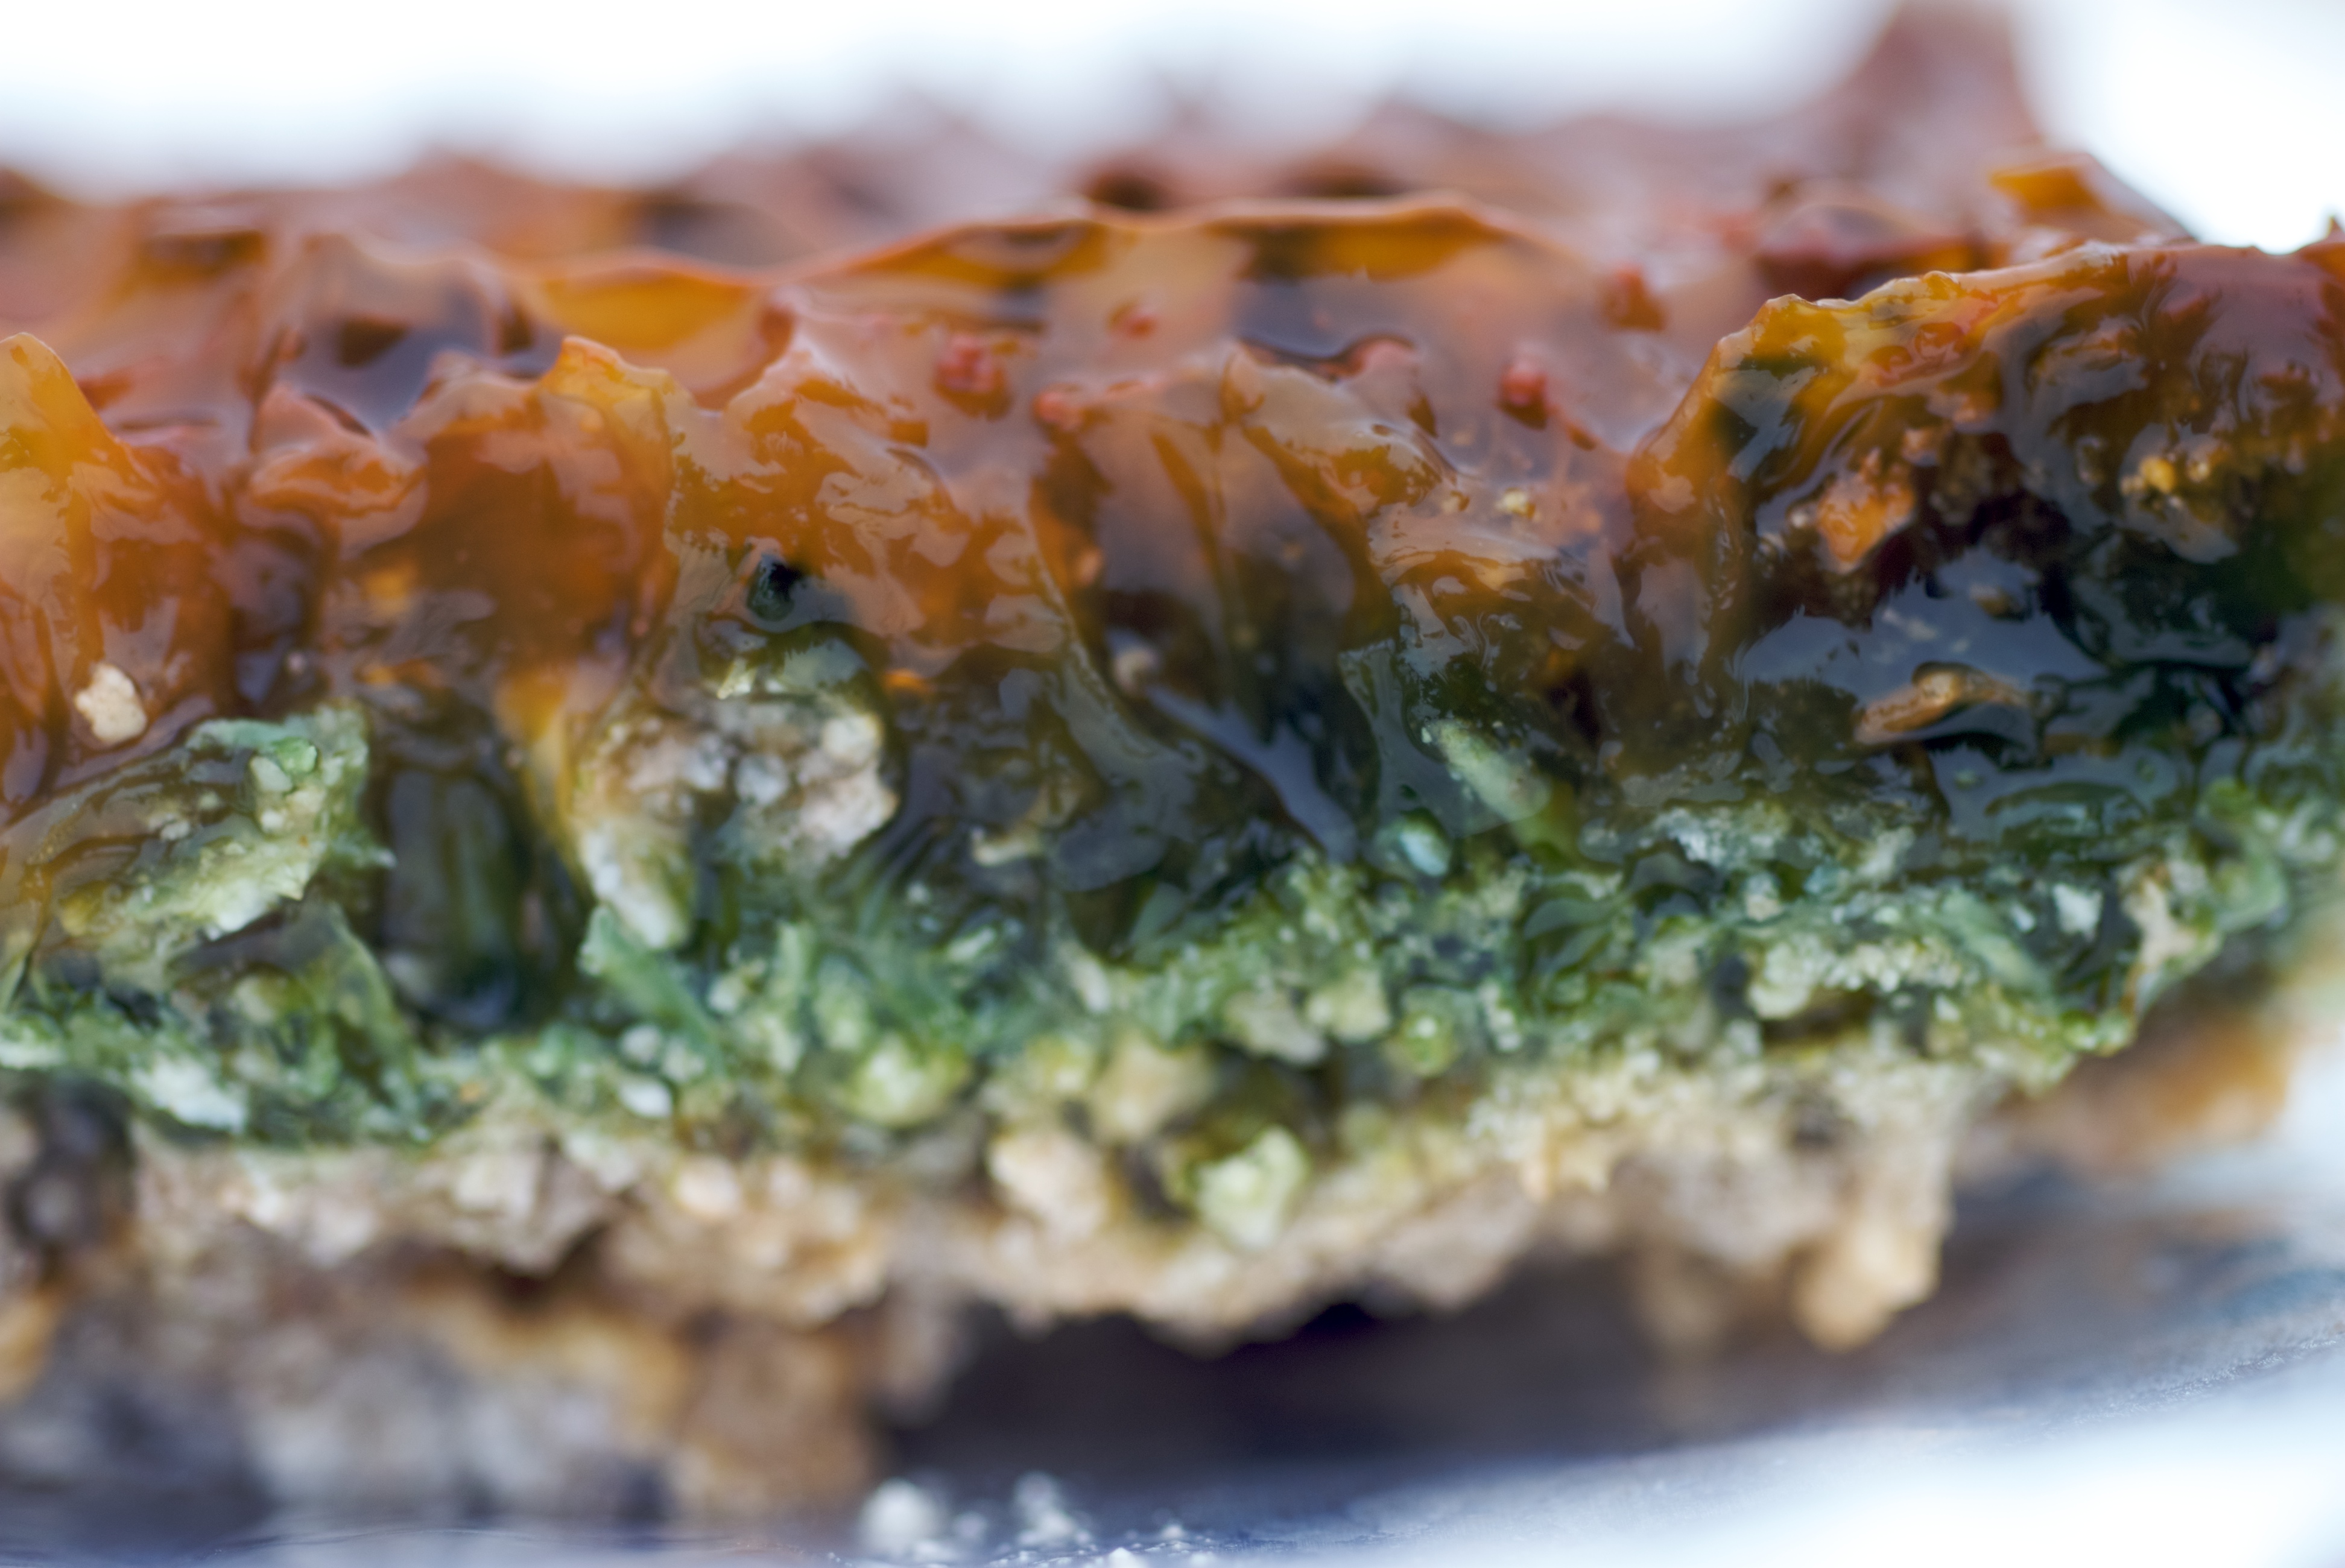
(上图:现代的菌毯(微生物席),可以看到明显的颜色分层)
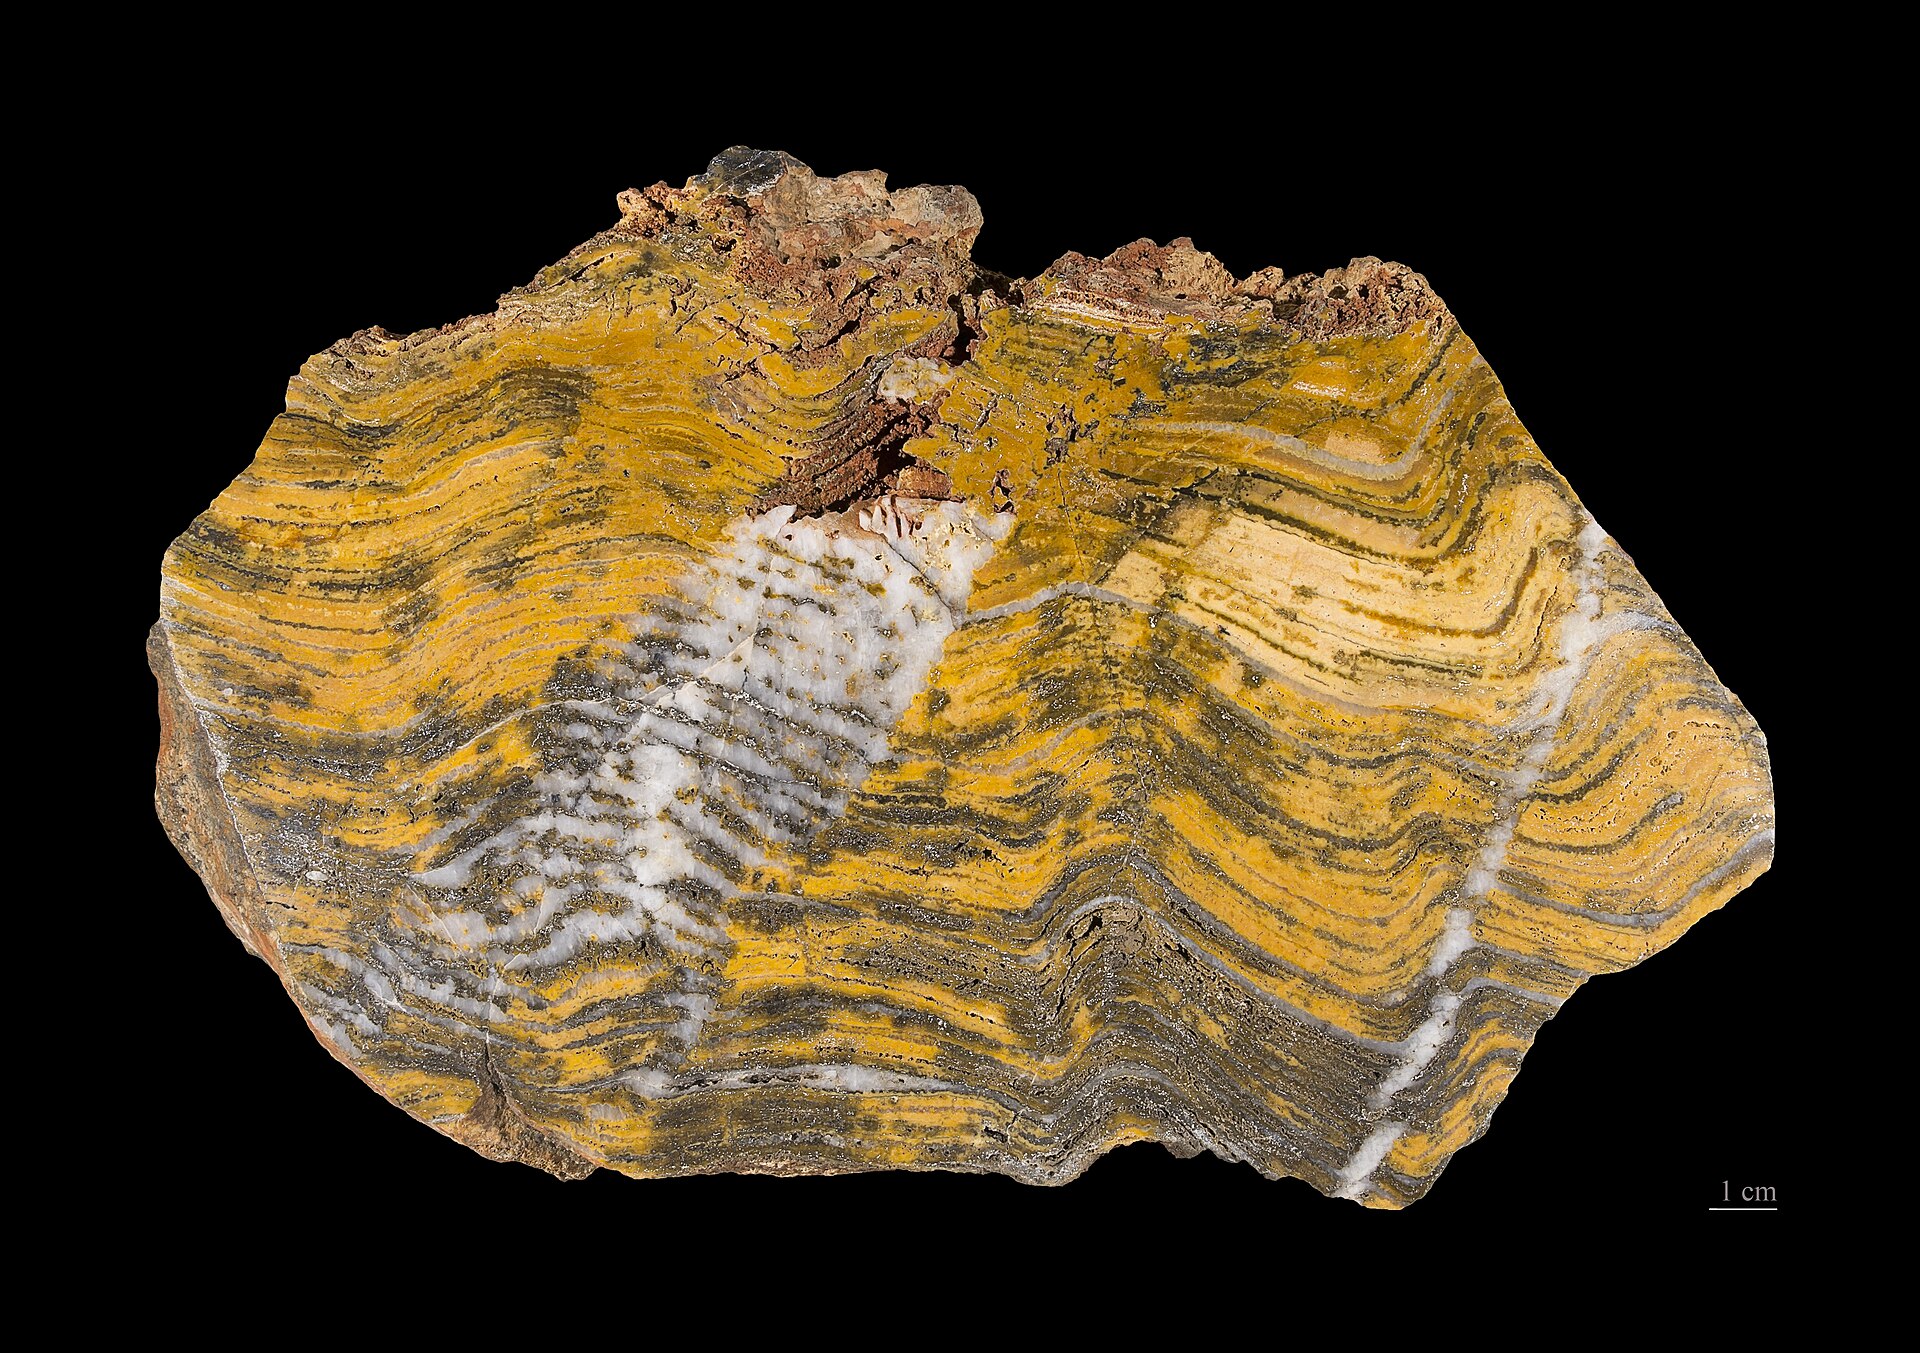
(上图:澳大利亚出土的菌毯化石(叠层石),距今约34亿年)
由此不难想象,在当年紫色古菌的阴影之下,一群古老的、好氧的蓝细菌正在悄然生长。在盐杆菌的压制之下,只有极少数的光子能够到达菌毯的底层,而为了最大限度地利用这光能的毫末,它们选择了一类名为叶绿素(Chlorophyll)的小分子。虽然这类绿色的物质看似违背了太阳光谱的规律,但却可以最大限度地接住从菌毯上层遗漏下来的残羹剩饭:
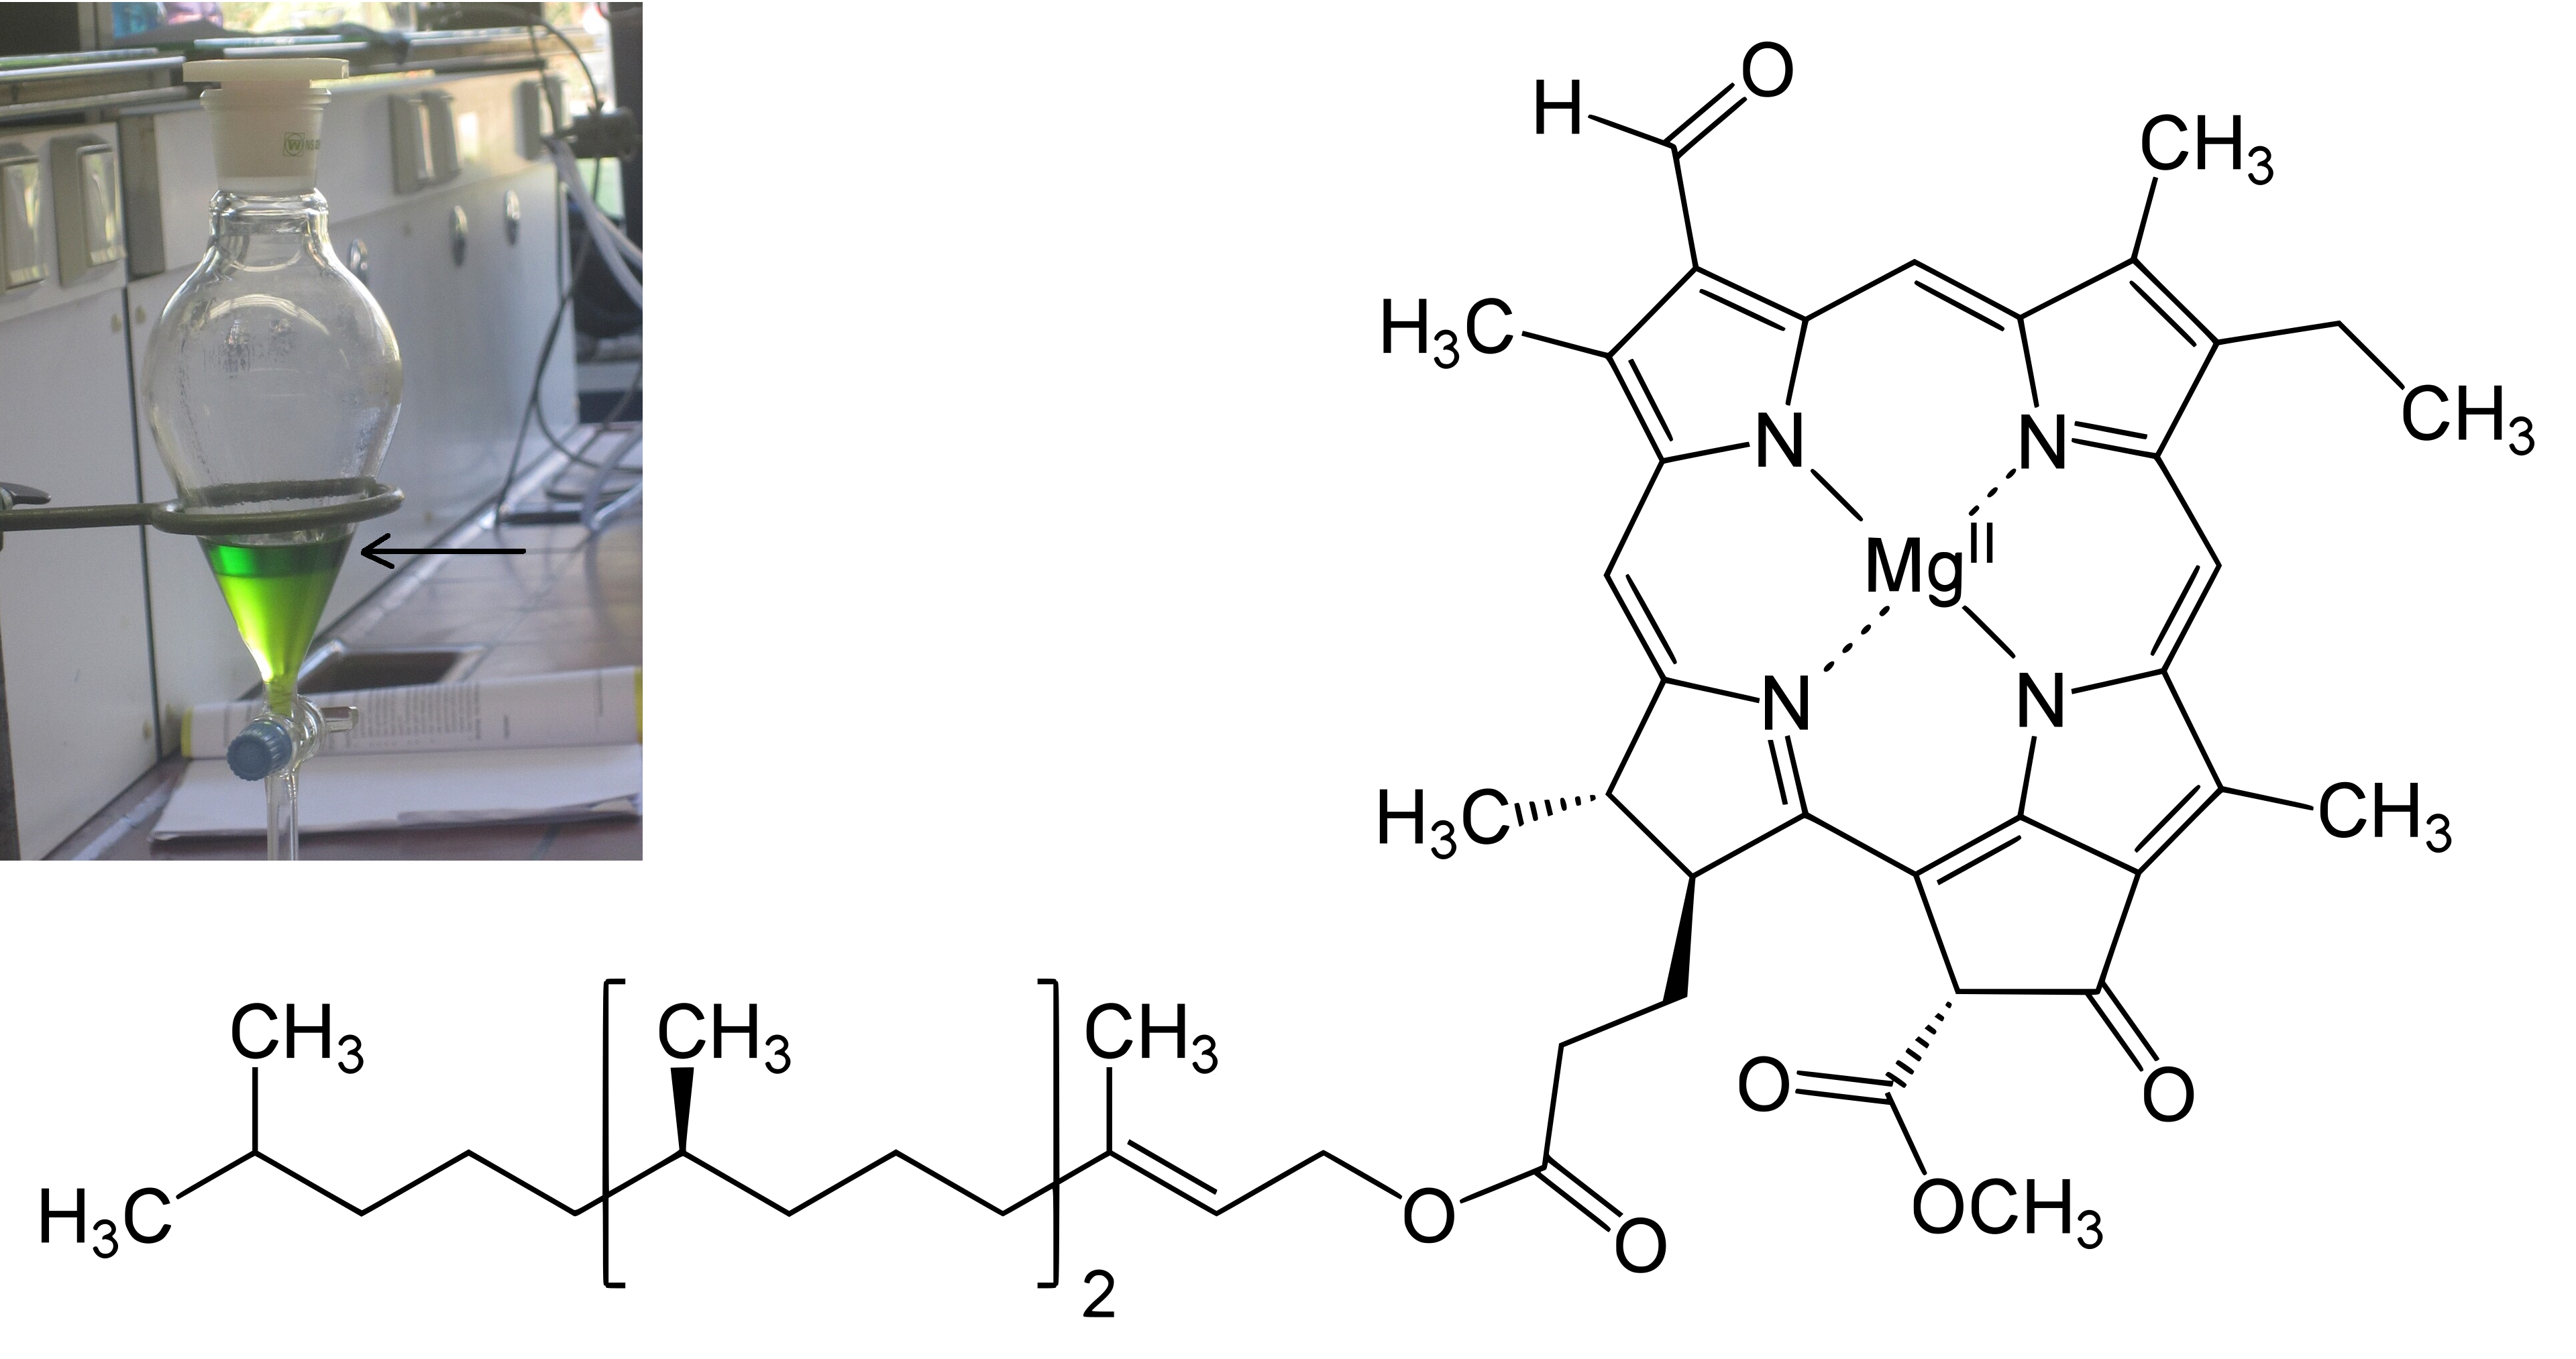
(上图:叶绿素A的结构;左上小图展示了其在有机溶剂中形成的绿色溶液)
(顺便提一句:我之前写过一篇长文,关于叶绿素A的化学全合成,有兴趣的可以看这个链接:https://zhuanlan.zhihu.com/p/706464074)
利用叶绿素,蓝细菌构建起了一套与盐杆菌完全不同的光合系统;相比于后者,这套新系统至少有两个方面的巨大优势。首先,其能量生产与物质生产是耦合的,这直接决定了蓝细菌光合作用的效率比盐杆菌高得多。具体来说,在蓝细菌的类囊体膜上,一系列主导光反应的蛋白质复合物(主要是光系统I(PSI)和光系统II(PSII))不仅能够生产ATP,还能够生产NADPH,而这种物质将直接参与后续合成糖类的暗反应,作为其中至关重要的还原剂。反观盐杆菌,其光合系统太过于简陋,除了ATP啥也生产不了,以至于还需要另一套生物合成系统来满足其物质所需。
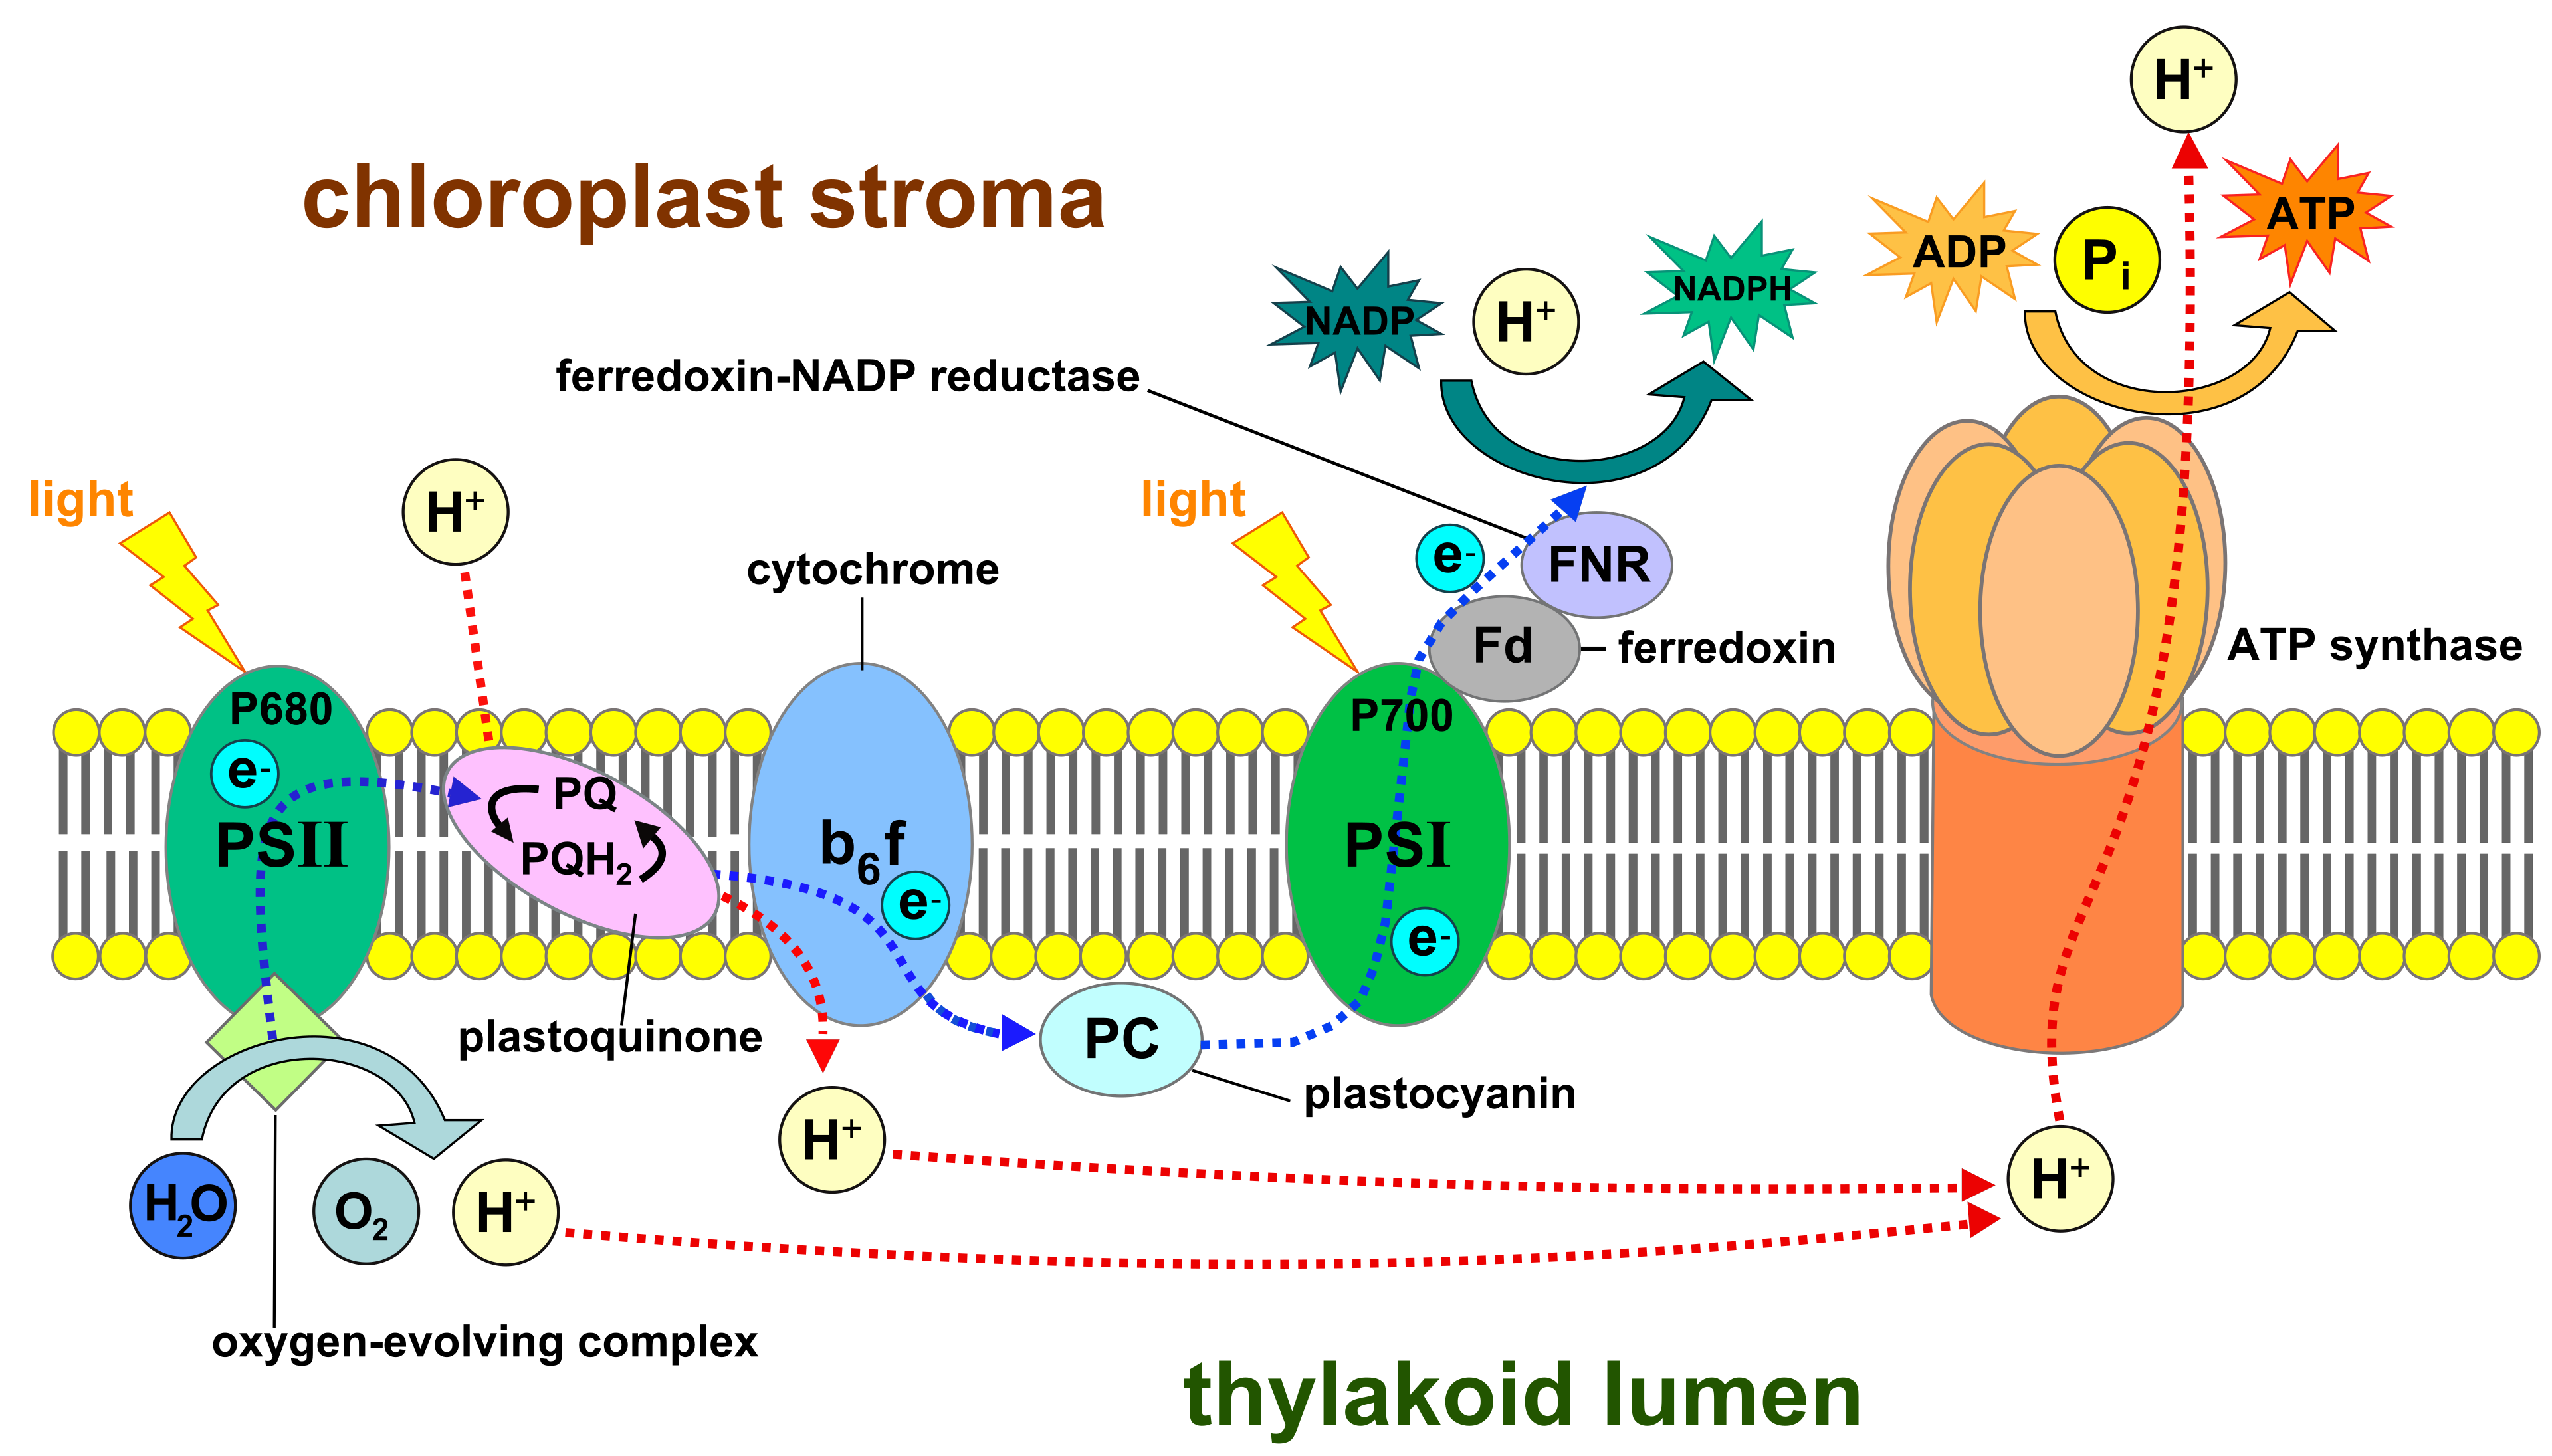
(上图:叶绿体(本质上也是一种内共生的蓝细菌)的光反应示意图,可以与之前盐杆菌的光合系统示意图进行对比)
更加关键的是,蓝细菌的PSII足够高能,所以它们可以利用光劈开水分子,夺取其中的氢原子并释放氧气,正如当年石缝中的放射线那样。恰好,作为副产物的氧气不仅可以供蓝细菌自己呼吸,还能够顺手清理掉周围抢地盘的厌氧菌,堪称一举两得。
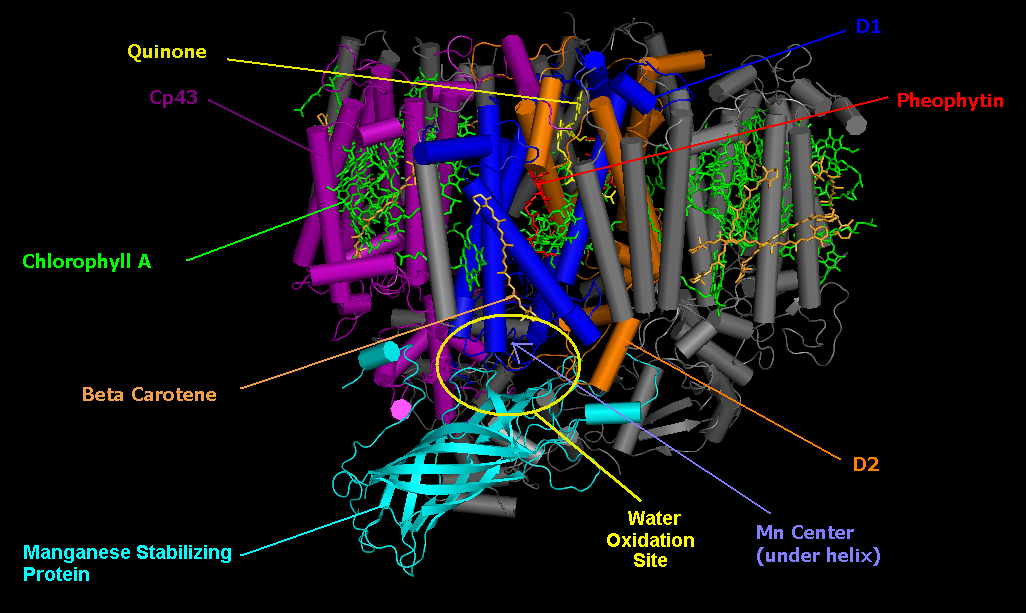
(上图:蓝细菌PSII单体的结构)
分子生物学和古生物学证据都表明,至少在30亿年前,就已经有一支蓝细菌把这种新光合系统点成了完全体;这标志着蓝细菌门的核心类群——蓝藻纲(Cyanophyceae)登上了历史舞台,也为一场翻天覆地的变革拉开了帷幕:
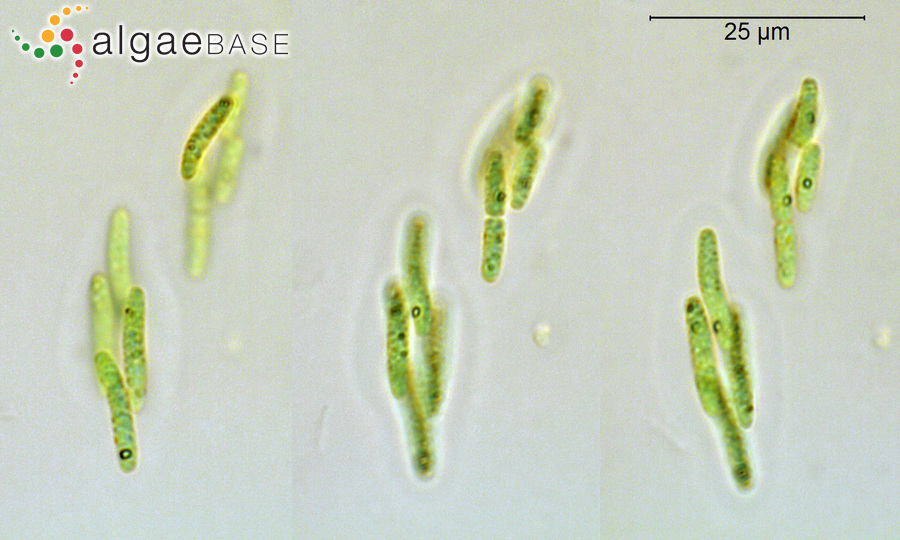
(上图:胶藻菌属某种(Gloeobacter sp.);其代表了现生蓝藻纲中最古老的谱系——胶藻菌目(Gloeobacterales),分化时间约30亿年)
想象一下吧,在那个看似美好的紫色地球上,在厚重的盐杆菌菌毯的深处,有一群格格不入的绿色生物正在夜以继日地收集残留的光子,并用它制造剧毒的氧气。当某处的氧气积攒到一定浓度后,那里的厌氧菌便会成片地凋零,并被新一代的好氧菌填补空缺。一开始,盐杆菌也许并不在意,毕竟当时的地球上到处都是还原性的物质;大气里弥漫的甲烷,海洋中的亚铁离子都能轻易地将氧气淬灭。或许是太久远的和平已经让它们忘记,演化游戏从来都是你死我活的修罗场,残酷的竞争才是生命的常态。终于,在24.6亿年前的成铁纪,在地球大气中出现游离氧气的刹那,这场誓要打翻整个旧秩序的革命来到了最高潮,也就是众所周知的大氧化事件(Great Oxidation Event,GOE):
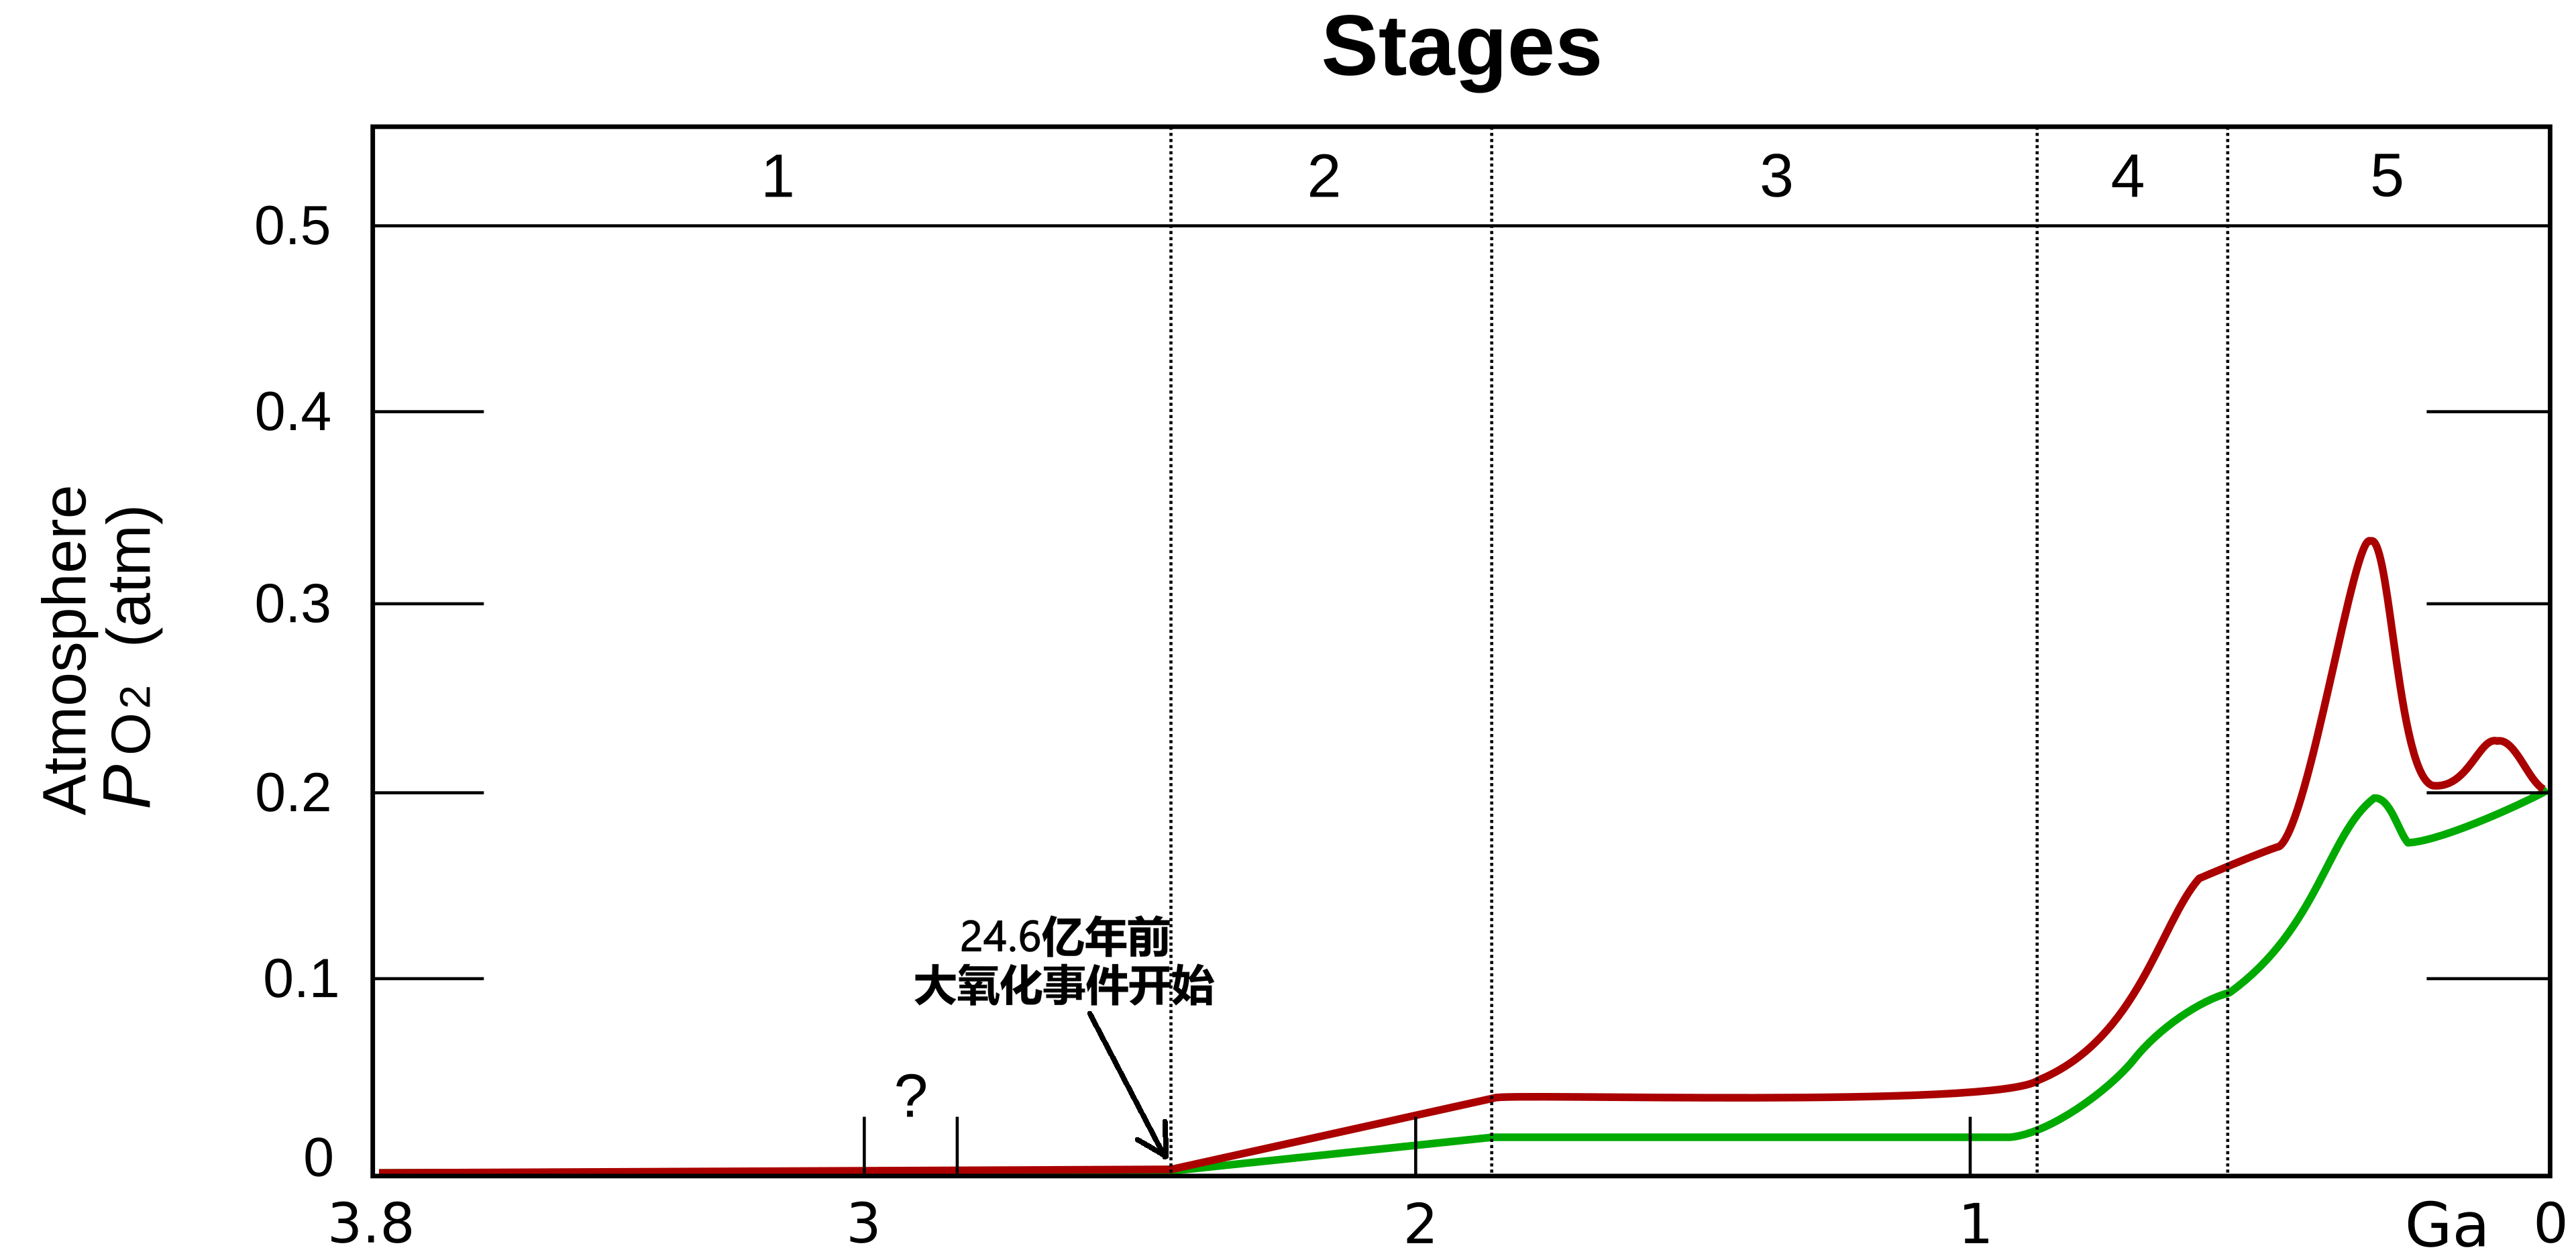
(上图:地球历史上大气中的氧气浓度,红色和绿色分别代表了预测的上下界;需要注意的是,此图虽被广泛引用,但由于年代久远,部分时间节点已经偏离目前的最新研究,因此请以正文为准)
或许直到那一刻,盐杆菌才从那紫色的田园梦中惊醒,但时间的进程却已把它们远远地甩在了身后。蓝藻和其他好氧菌一路高歌猛进,收割着紫色帝国的每一个角落。同时,氧气还彻底摧毁了大气中的甲烷等强温室气体,再叠加火山活动低迷和二氧化碳被消耗等因素,导致大氧化期间的地球迎来了史上最严重的一次全球变冷,史称休伦冰河期。直到21-20亿年前的层侵纪和造山纪之交,由于新一轮火山活动和造陆运动的影响,冰期和大氧化事件才先后结束,但整个地球的面貌也已彻底改观。
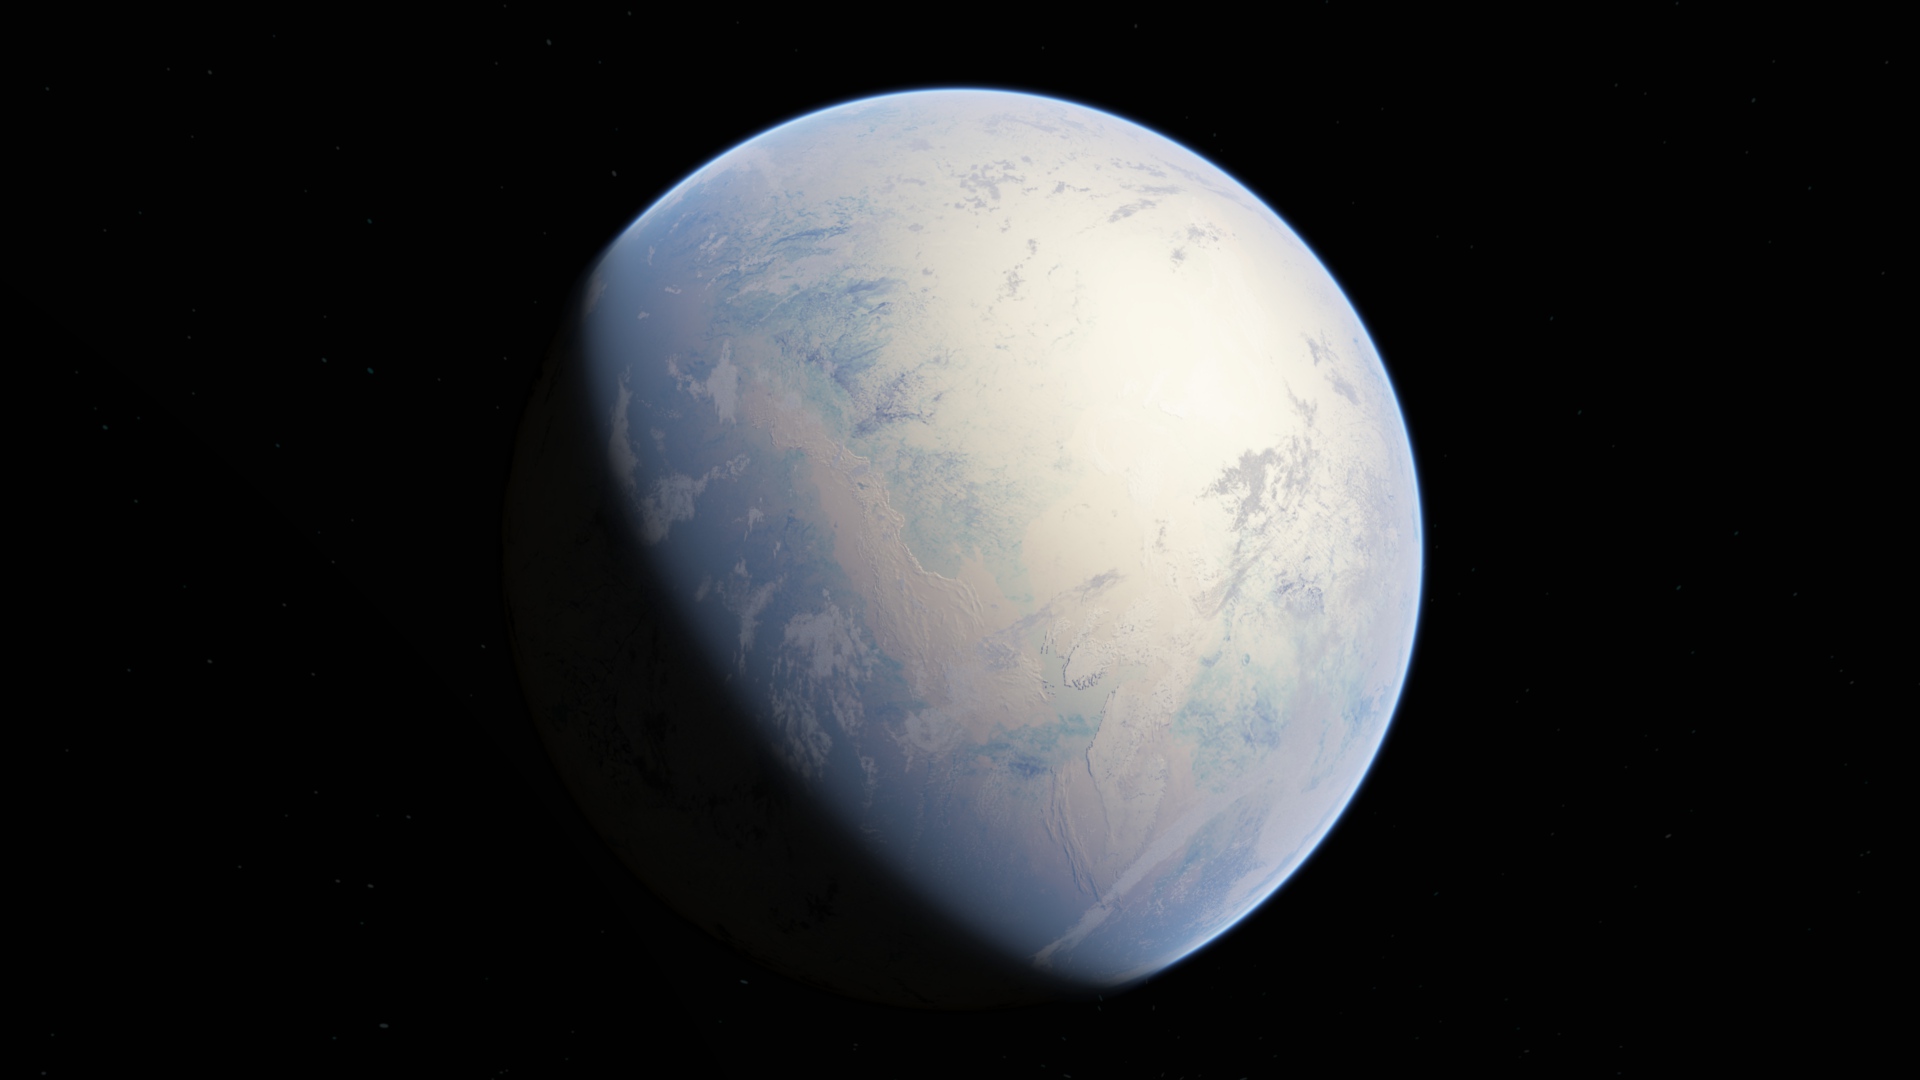
(上图:艺术家对于休伦冰河期间地球的想象;事实上,关于这一时期地球的样貌存在诸多争议,此处不予讨论)
在这充满氧气的新时代,盐杆菌最后的孑遗也不得不低下高傲的头颅。它们从曾经的对手那里窃取了一些抗氧化的基因,最终将自己也改造成了好氧菌;它们还额外演化出了一种被称为盐紫红质(Halorhodopsin)的复合物,其可以利用光能运送氯离子,从而允许盐杆菌在其他生物望而生畏的高浓度盐湖中扎根。除此之外,它们大体上还保持了祖先的生活习惯,用着古老而简陋的光合系统,以视黄醛为色素,从绿光中汲取能量。它们往往会把整片湖水都染成壮观的紫红色,像一座华丽的墓碑,向过往的游人诉说着紫色地球的往事。
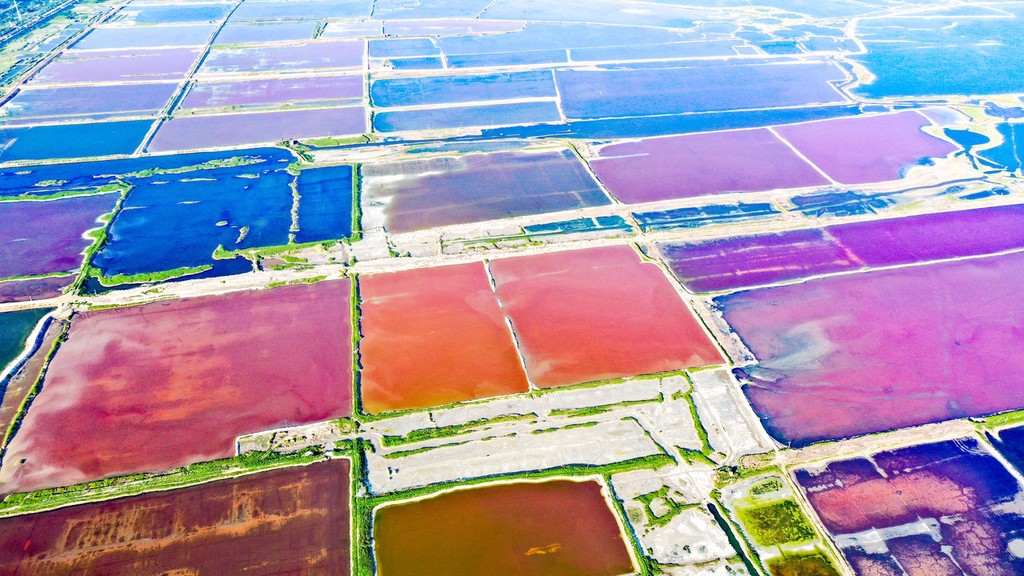
(上图:山西运城的彩色盐湖。需要注意的是,这些颜色并非完全由盐杆菌所致,杜氏盐藻(D. salina)这种真核藻类也具有较大贡献;2024年,还有人在这里发现了盐杆菌属的新物种,命名为运城盐杆菌(H. yunchengense))
而对于大氧化事件的最大受益者——蓝藻来说,虽然曾经的对手已经不在,但五亿多年的演化已经让它们的光合系统积重难返。在无意之中,盐杆菌为蓝藻创造了一个演化陷阱,使得它们在之后的岁月里也难以企及绿光,难以企及这份最丰沛的资源。在接下来的二十多亿年里,地球上几乎所有的光合生物都无法从根源上解决这种诅咒,这最终为今天的我们留下了一个绿色的世界,一个不合理却又合理的绿色世界:
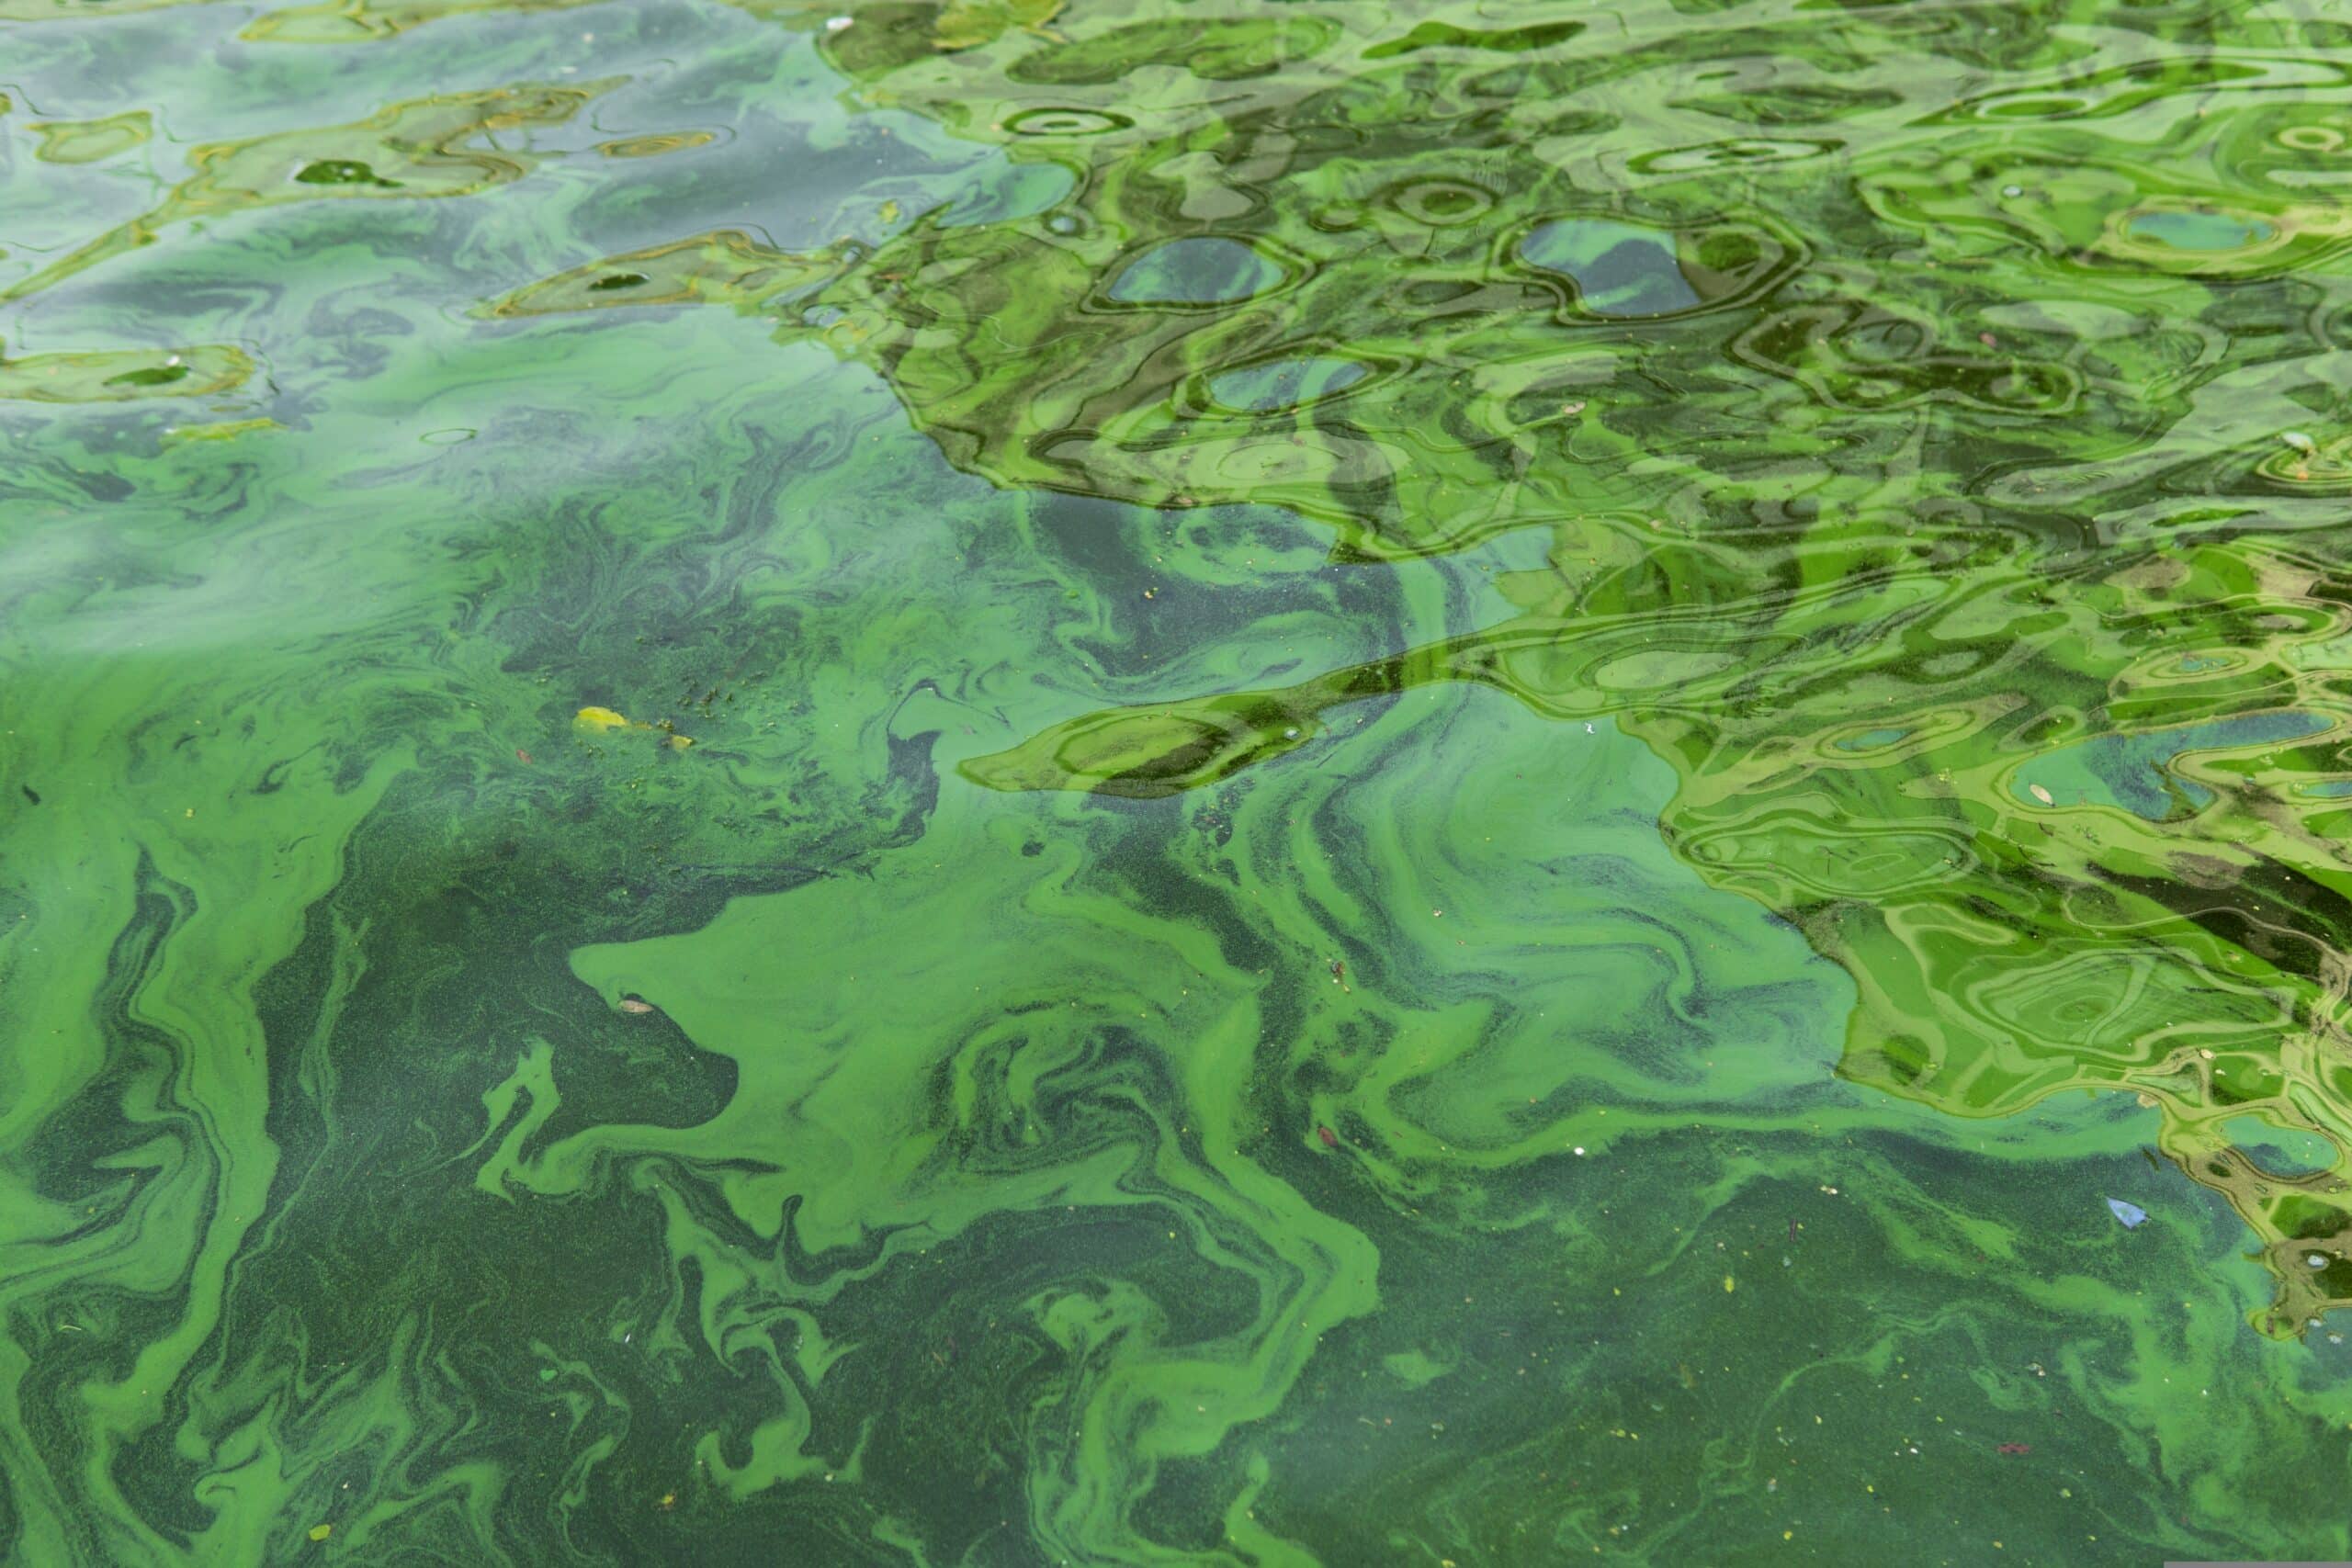
(上图:蓝藻藻华)
第三篇:紫色地球的乌云
紫色地球的故事就这样讲完了,但这篇文章显然还没到结尾。必须要强调的是,紫色地球假说提出于2007年,到今天已有近20年的历史,而在这段时间内,各种新的假说和证据都在不断涌现。虽然它描述的演化图景十分完美,而且已经深入人心,但科学的奇妙之处就在于,每当有人觉得理论的大厦已经无懈可击之时,科学一定会为他送来几朵乌云,并让他意识到自己此前是多么无知。
2023年,第一朵乌云来了。有人从西班牙南部的一个盐湖里发现了一类前所未见的盐杆菌,并将其命名为红盐菌(Halorutilus)。它虽然看上去和其他盐杆菌并无两样,同样好氧、同样呈现出标志性的紫红色,但基因组分析却表明这货根本不会光合作用。前文提到,一般的盐杆菌同时拥有光能质子泵和光能氯离子泵,前者负责光合作用,后者则是对高盐环境的适应;但红盐菌,居然没有前者,只有后者。也就是说,这货根本无法利用光能产生ATP,只是借助光能调整细胞渗透压:
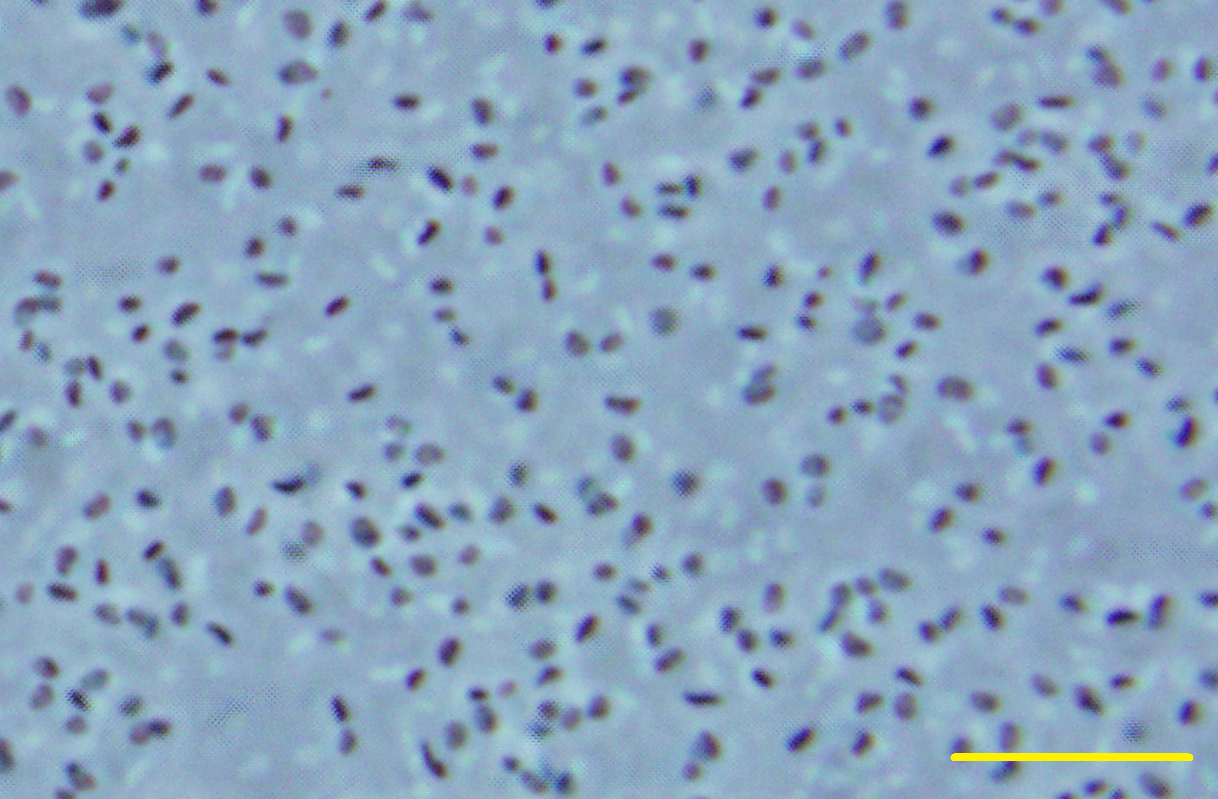
(上图:红盐菌(Halorutilus sp.)的培养物,比例尺:10μm)
另外,分子生物学研究明确地告诉我们,红盐菌代表了现存盐杆菌中最原始的分支。这下事情有意思了:紫色地球假说认为,盐杆菌是地球上第一支发展出光合作用的族裔,此后在大氧化事件的打击下才退居二线,进入盐湖并演化出有氧呼吸;可现在,却出现了一支好氧,但不会光合作用的盐杆菌。这说明了什么?
一开始,许多人还不敢相信紫色地球假说就被这么一个小东西捅破了,但后续的研究又进一步扩大了事态。越来越多基干的盐杆菌谱系被从各种犄角旮旯里翻了出来,而它们无一例外,全都不会光合作用;这已经是在明示,盐杆菌演化出光合作用其实相当之晚:
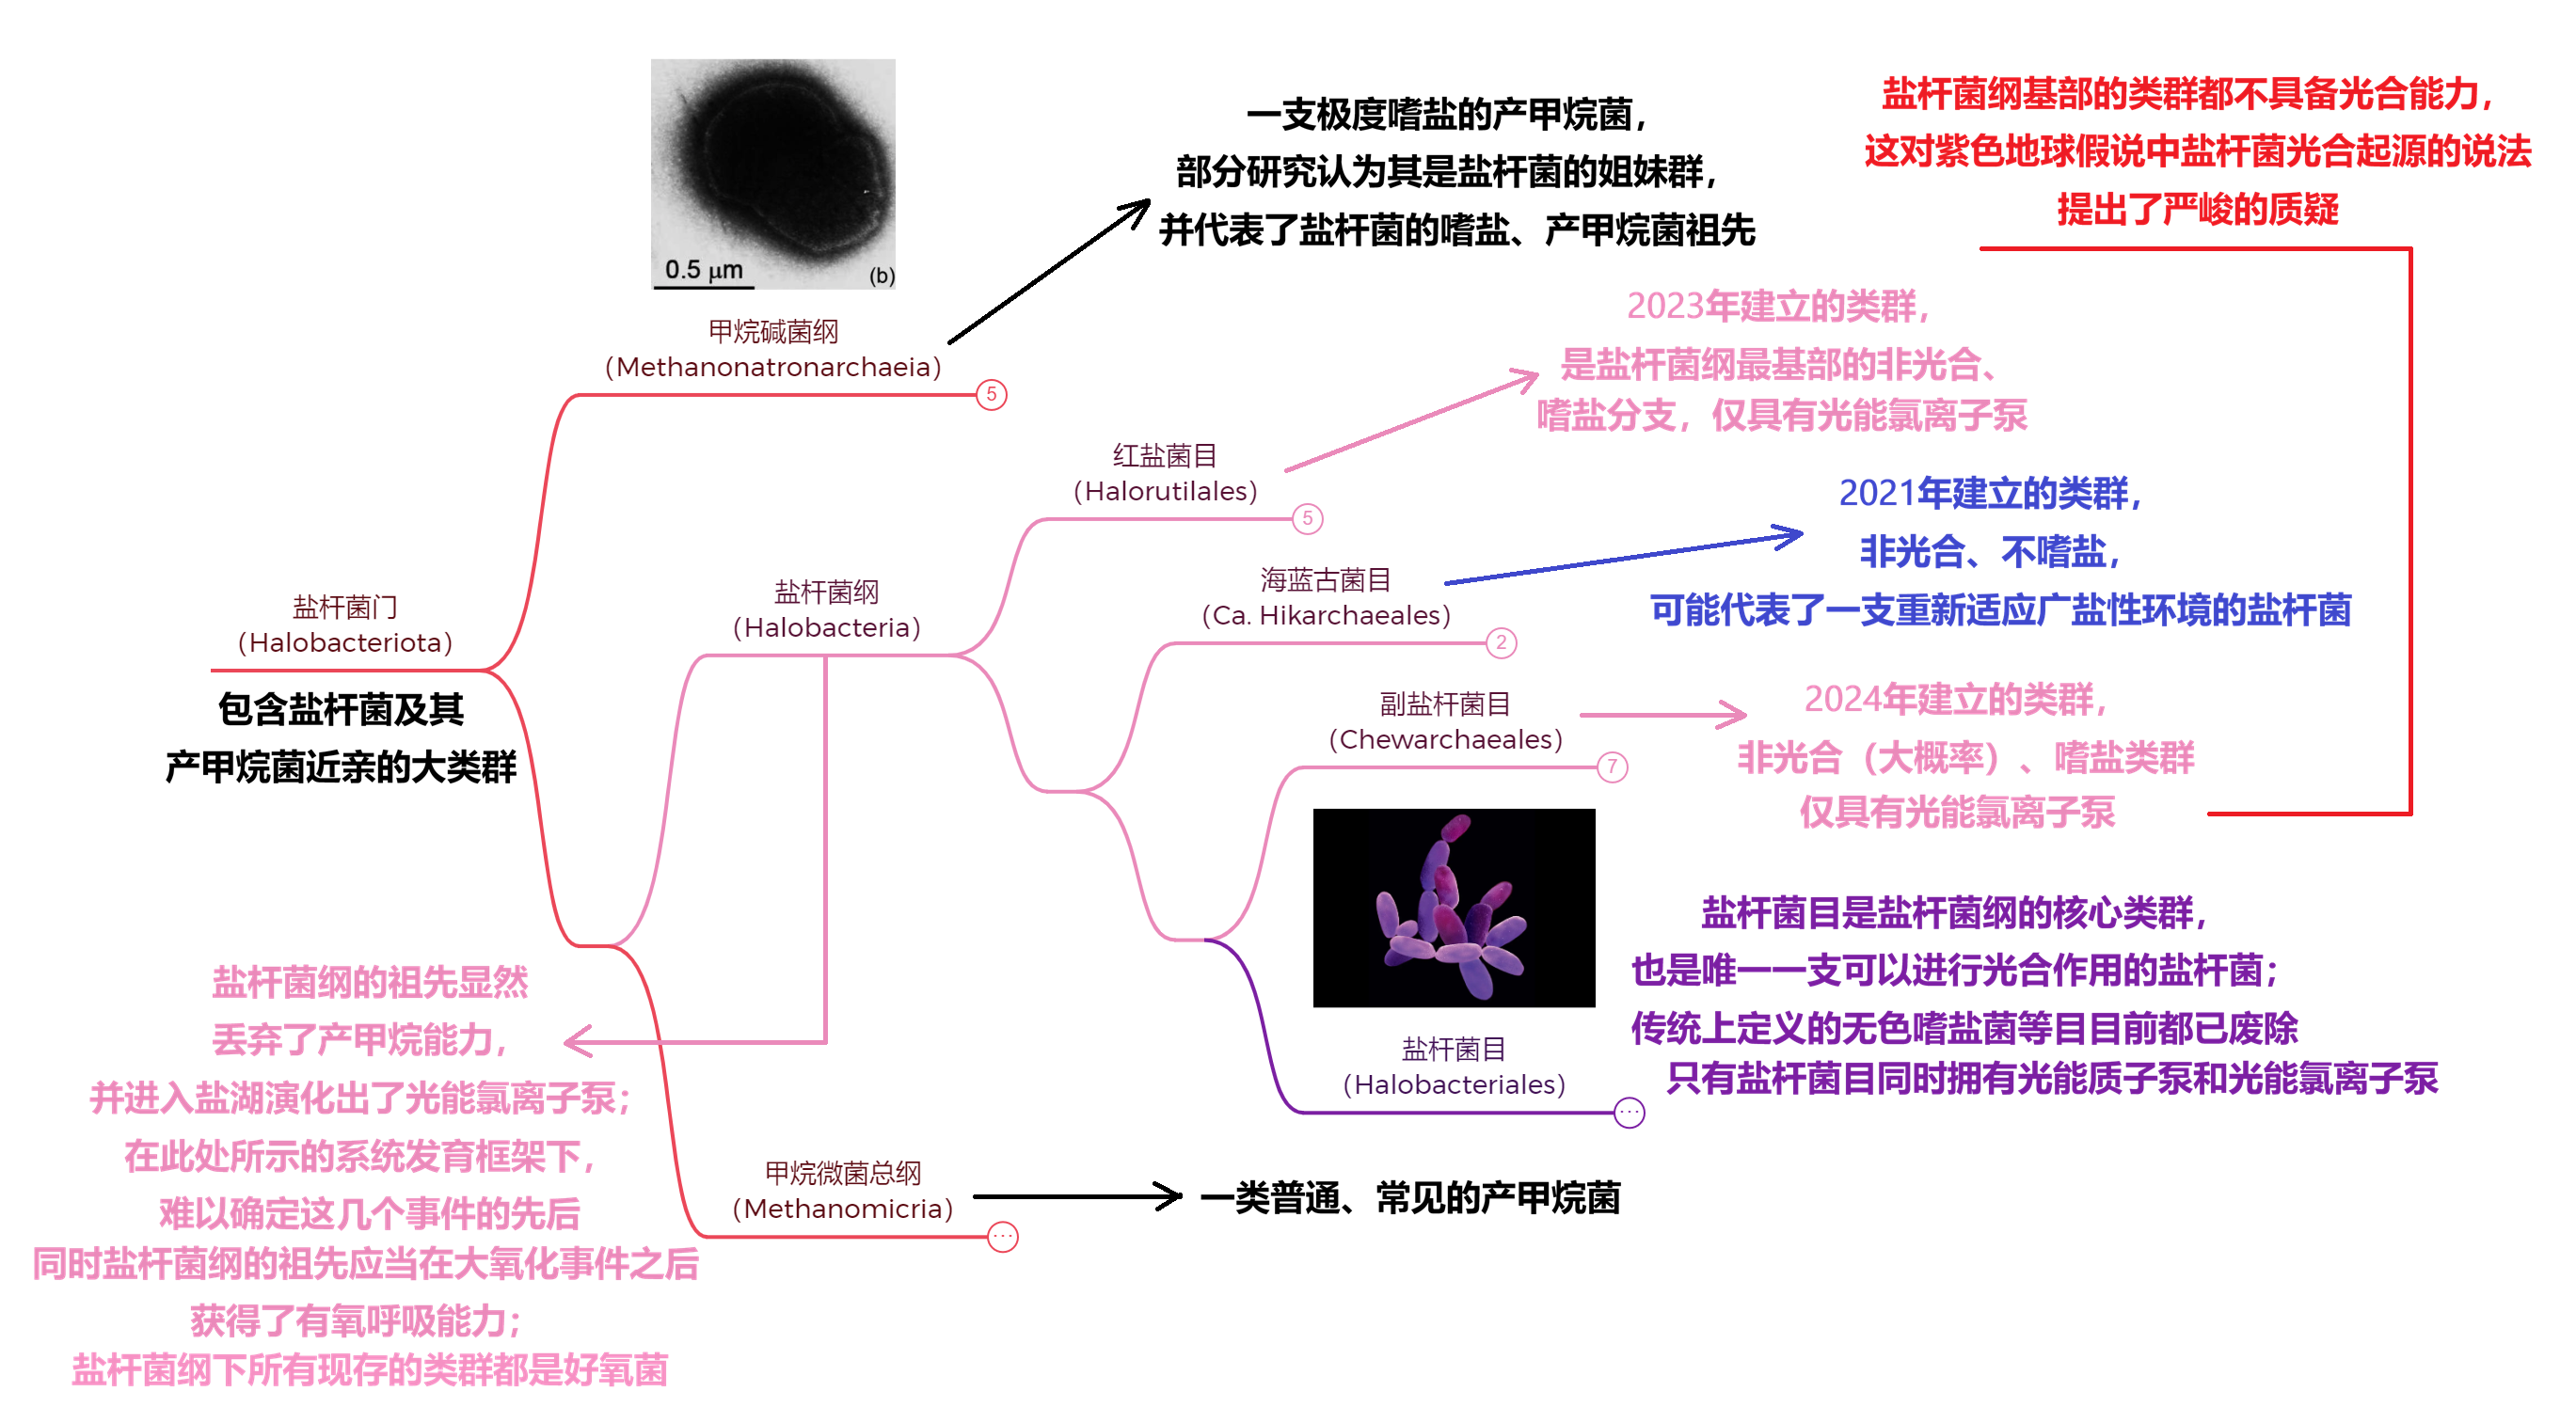
(上图:盐杆菌门下的系统发育关系与分析;请仔细理解其中的逻辑,尤其是尝试理解为什么在新发现的类群的影响下,盐杆菌纲更可能是非光合起源)
如此一来,紫色地球假说的起点可能就错了:盐杆菌根本不是光合作用的先驱,它们的祖先和其他古菌一样,早年都是产甲烷菌,在大氧化运动之后逃难到盐湖这样的极端环境中,为此演化出了光能氯离子泵,并在偶然间学会了有氧呼吸,之后再逐渐演化出光合作用。它们或许本就不是先行者,而是在细菌威压下尘芥中的流民;它们虽然展示了光合作用的另一种可能,但这套基于视黄醛的简陋系统从来都不足以与蓝藻的光系统I、光系统II相提并论。
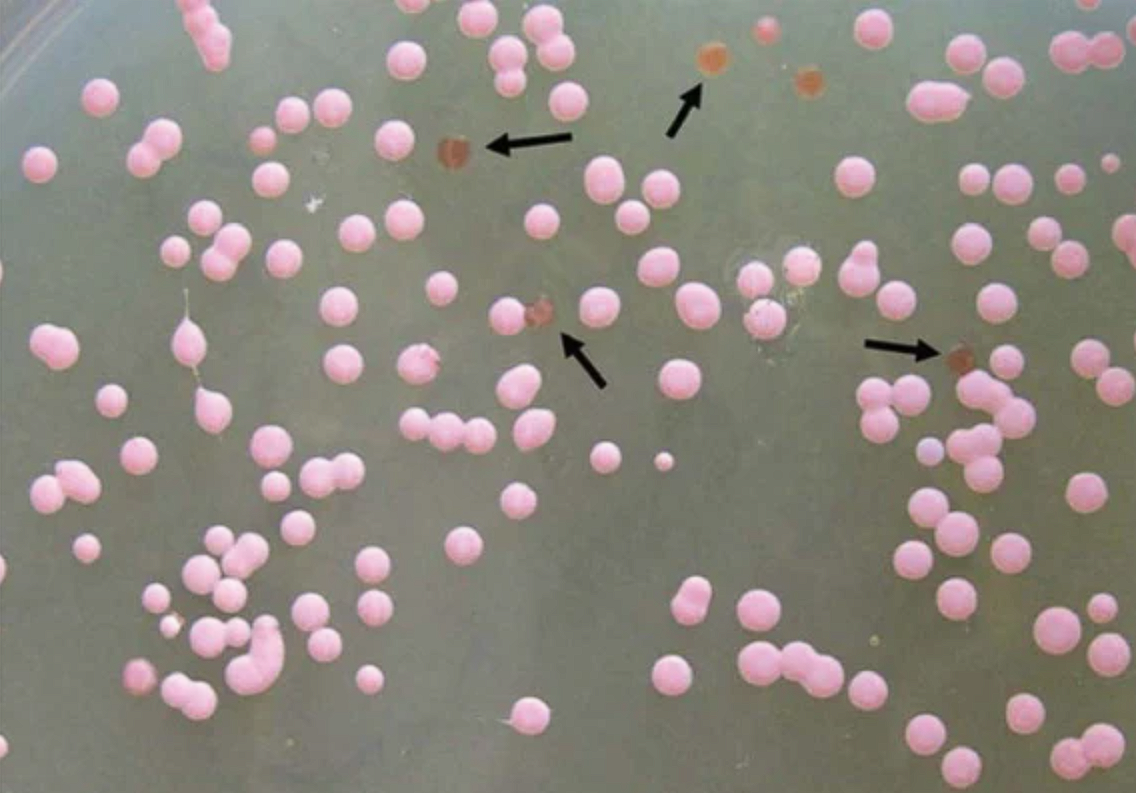
(上图:培养皿中的盐杆菌(Halobacterium sp.)菌落;箭头指向一种变异型的橙色菌落,由某种巨型质粒引起,大多数菌落呈粉红色)
另一朵乌云来自传说中的非产氧光合细菌。没错,虽然产氧光合是蓝藻的专利,但在人才辈出的细菌域中,还有许多成员可以进行不产氧的光合作用。分子生物学研究发现,虽然它们的光合系统与蓝藻的相比看似区别很大(前者相对来说比较简单),但其中的核心蛋白质复合物结构非常相似,暗示二者在演化上具有共同的起源:
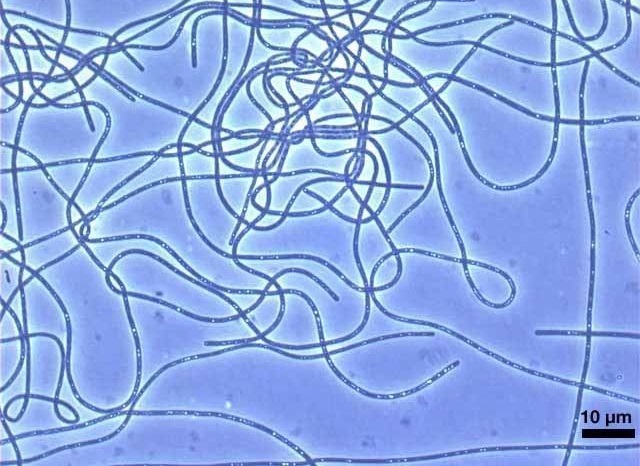
(上图:绿弯菌属某种(Chloroflexus sp.);绿弯菌是一类代表性的不产氧光合细菌,使用硫化氢等低价态硫化合物作为氢源)
分子钟证据表明,虽然现存的光合细菌分散在演化树上的各个位置,但它们的光合系统都可以追溯到距今大约37亿年前的一个祖先,也就是所谓的最后光合共同祖先(Last phototroph common ancestor,LPCA);它或许才是地球光合作用真正的先驱。从演化上推断,LPCA显然是某支早期的细菌,而非古菌,这也与前面所说的第一朵乌云完成了呼应。
所以,这一切背后的真相究竟是什么呢?传说中的紫色地球,真的只是一个虚妄的想象吗?
第四篇:新假说
(注意:新假说与紫色地球假说显然是冲突的,所以为了更好地理解,你需要把之前讲的暂时放在一边,在读完此章之后再对比两种假说的差异)
故事又要从大约40亿年前,细胞生命刚诞生那会讲起。那时的地球正处于晚期重轰炸期(Late Heavy Bombardment,LHB),无数的小天体密集地撞向这颗年轻的星球,而每次撞击都是字面意义上的地崩山摧,甚至可能导致海洋蒸发、大气升温。但就是在如此艰难的条件之下,有一支细胞生物却决定离开安逸的深海,去浅海甚至陆地硬刚残酷的自然伟力。它们被称为地细菌(Terrabacteria),是细菌域最基干的分支之一:
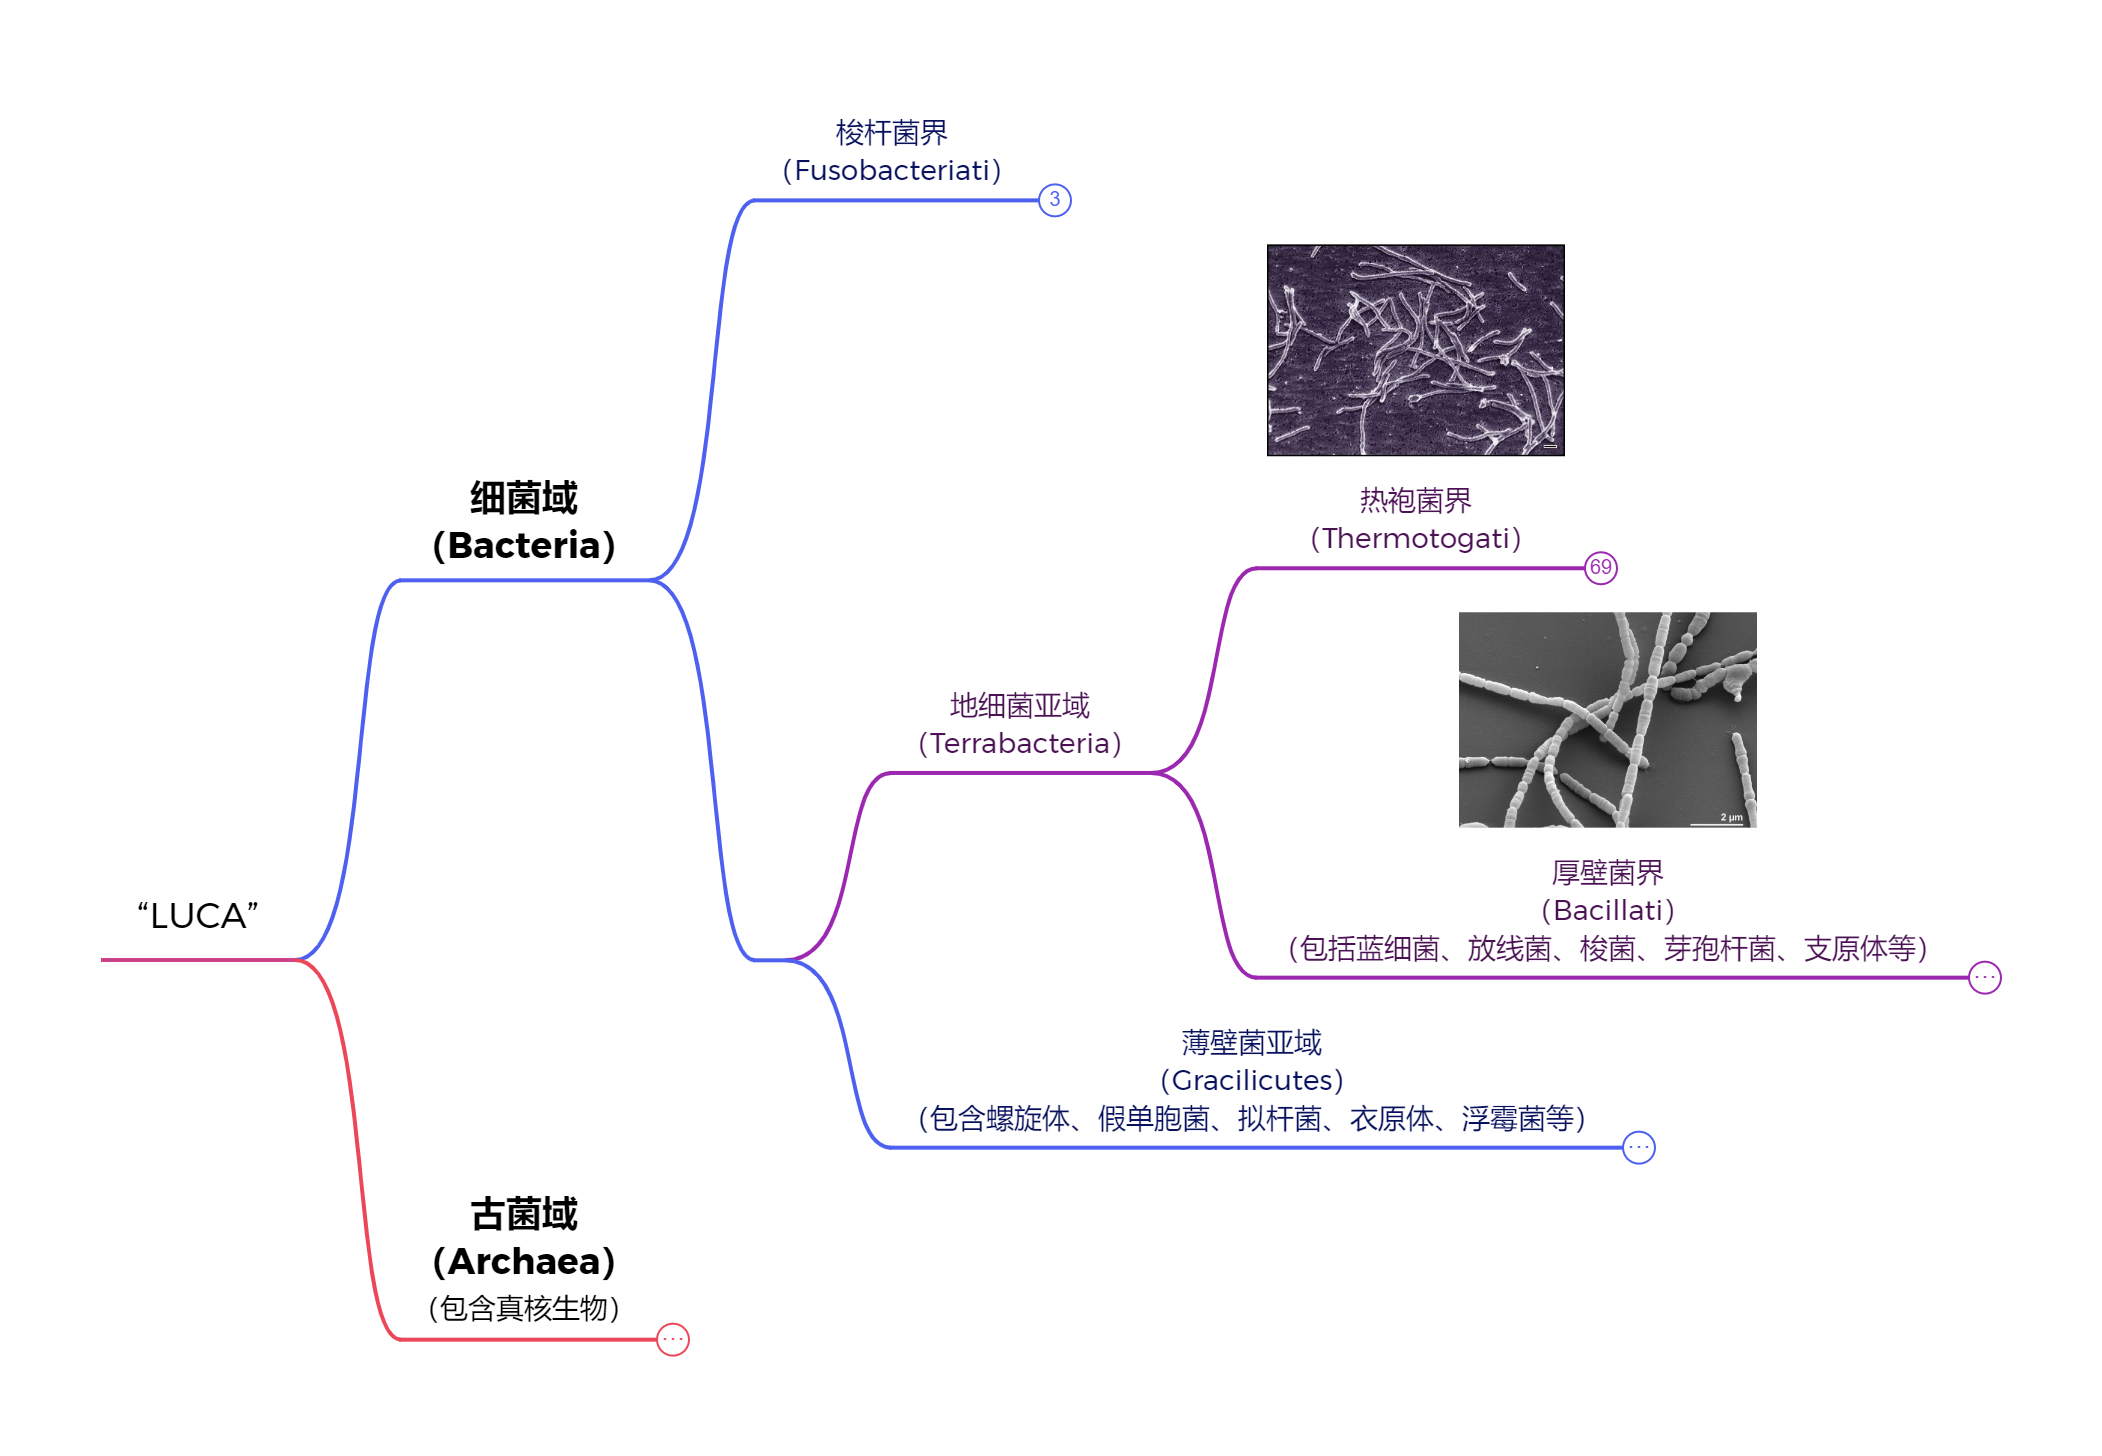
(上图:地细菌类(紫色标注)在生命之树上的位置;省略所有非细胞生物)
(题外话:现今地球上所有革兰氏阳性菌都属于地细菌,绝大多数能形成休眠孢子的细菌也属于地细菌,这些特征都被认为是远古时期陆地生活留下的演化印记)
据推测,地细菌的祖先应当是一种具有双层膜的嗜热菌,可能通过硫化合物的代谢获取能量,并且拥有一条负责运动的鞭毛。时至今日,在地细菌的基干类群——热袍菌界(Thermotogati)中,大多数成员仍然保留了类似的形态和习性;它们广泛分布于世界各地的热液环境(主要是陆地热泉)中,延续着几十亿年都不曾动摇的祖宗之法:
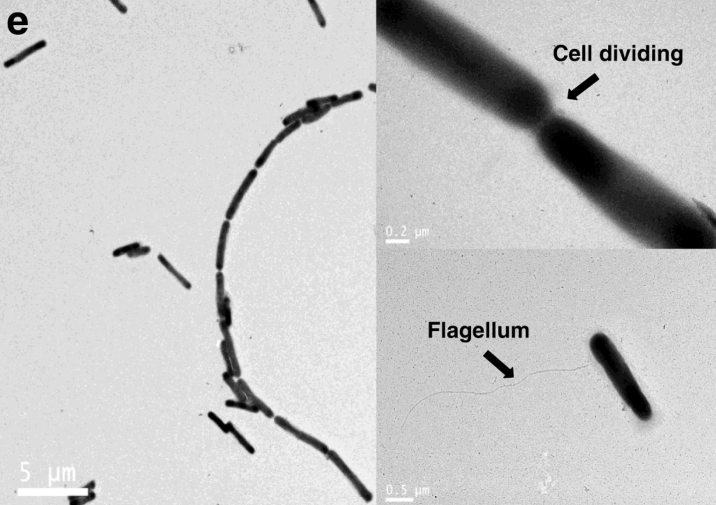
(上图:近年由我国科学家主导发现的热袍菌界新成员——嗜热祝融菌(Zhurongbacter thermophilus),具有产氢和硫还原能力)
当然,并不是所有地细菌都只会墨守成规。大约在38亿年前,随着晚期重轰炸期的结束,地球环境终于稳定了下来;曾经遍布熔岩的地表逐渐冷却,而从火海中诞生的第一批陆地嗜热菌也就此退居二线。此后很长一段时间,留在舞台中央的都是另一个基干的地细菌家族,人称厚壁菌界(Bacillati);它们在环境变化之后果断放弃了嗜热的习性,加上其本身作为地细菌的先发优势,能在新时代快速繁盛起来也理所应当:
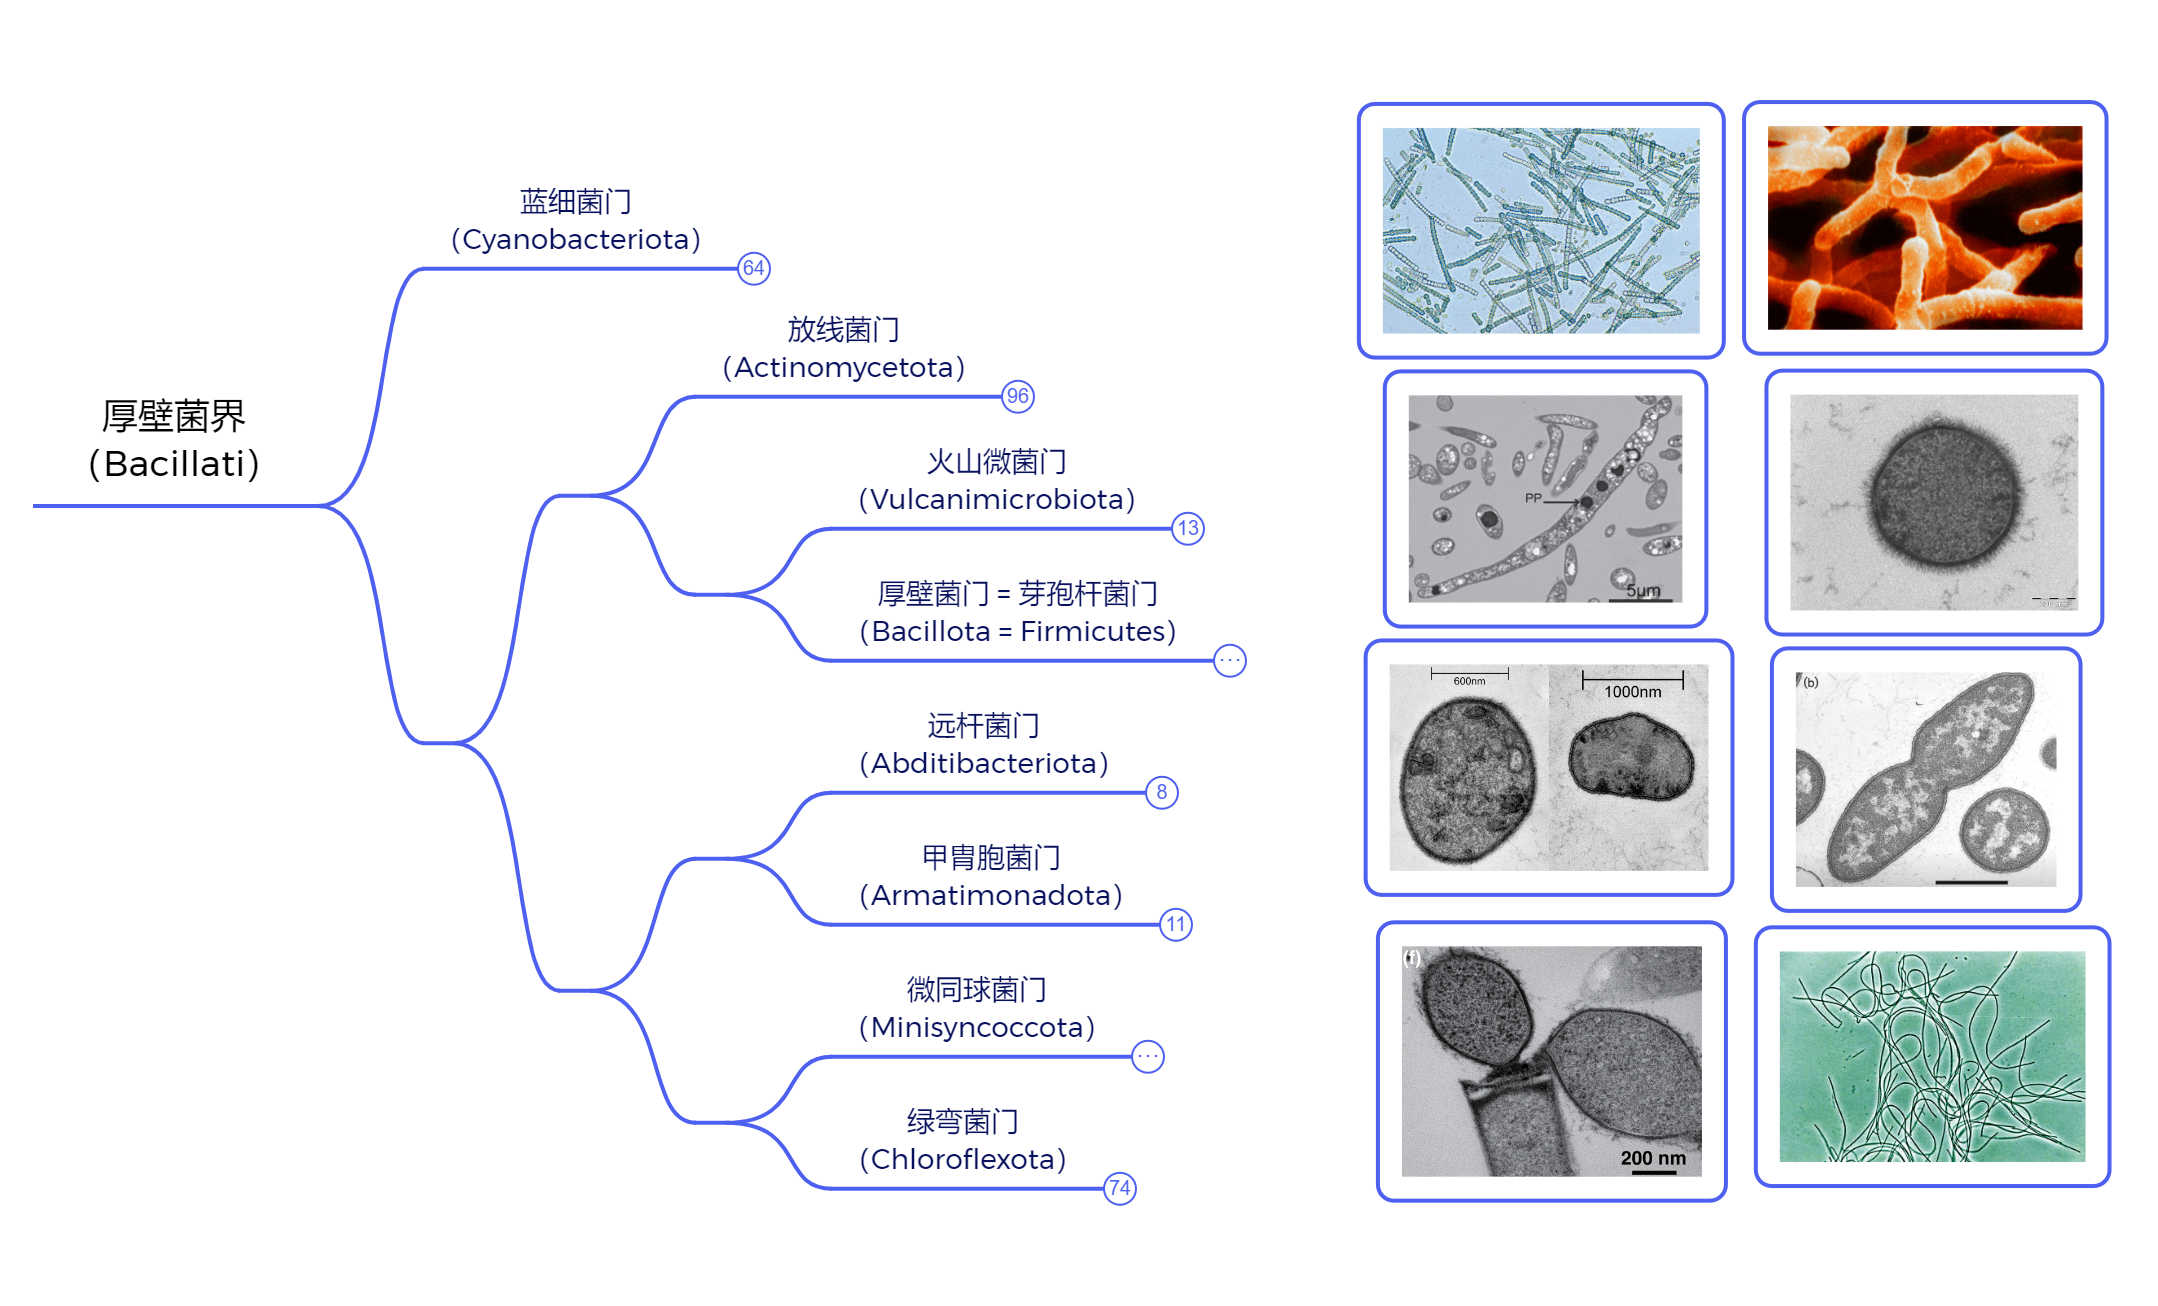
(上图:厚壁菌界的系统发育树,省略了所有未被正式培养的门类;蓝细菌门的位置具有争议,此处依据Davín et al., 2025将其作为厚壁菌界的基干类群)
但是,随着家族愈发壮大,那套祖传的、以化能合成为核心的代谢系统却显得越来越陈旧、越来越难以维持它们的野心;它们迫切地需要一个新的能量源,一个强大到足以支撑起整个表层生态系统的能量源。恰好,在陨石扬起的阴霾散去之后,阳光得以穿透清澈的大气,抵达那久违的浅海与陆地;在这种背景下,光合作用的诞生也似乎就成为了必然。
于是,在经过了亿万斯年的演化穷举之后,前文所述的最后光合共同祖先(LPCA)在干群厚壁菌界中诞生了。虽然具体的细节已经很难考证,但分子生物学证据表明,LPCA很可能已经具备了两套基于叶绿素的光合复合物,即光合反应中心I(RCI)与光合反应中心II(RCII)。在此之后,这颗星球上诞生的几乎所有光合生物(盐杆菌等除外),在演化上要么直接是LPCA的后代,要么就是通过水平基因转移或者内共生事件间接地继承了LPCA的光合系统。总之,如今地球上所有生活在阳光之下的生灵,或许都得好好感谢一下这位三十多亿年前的、远古洪荒时期的伟大先驱:
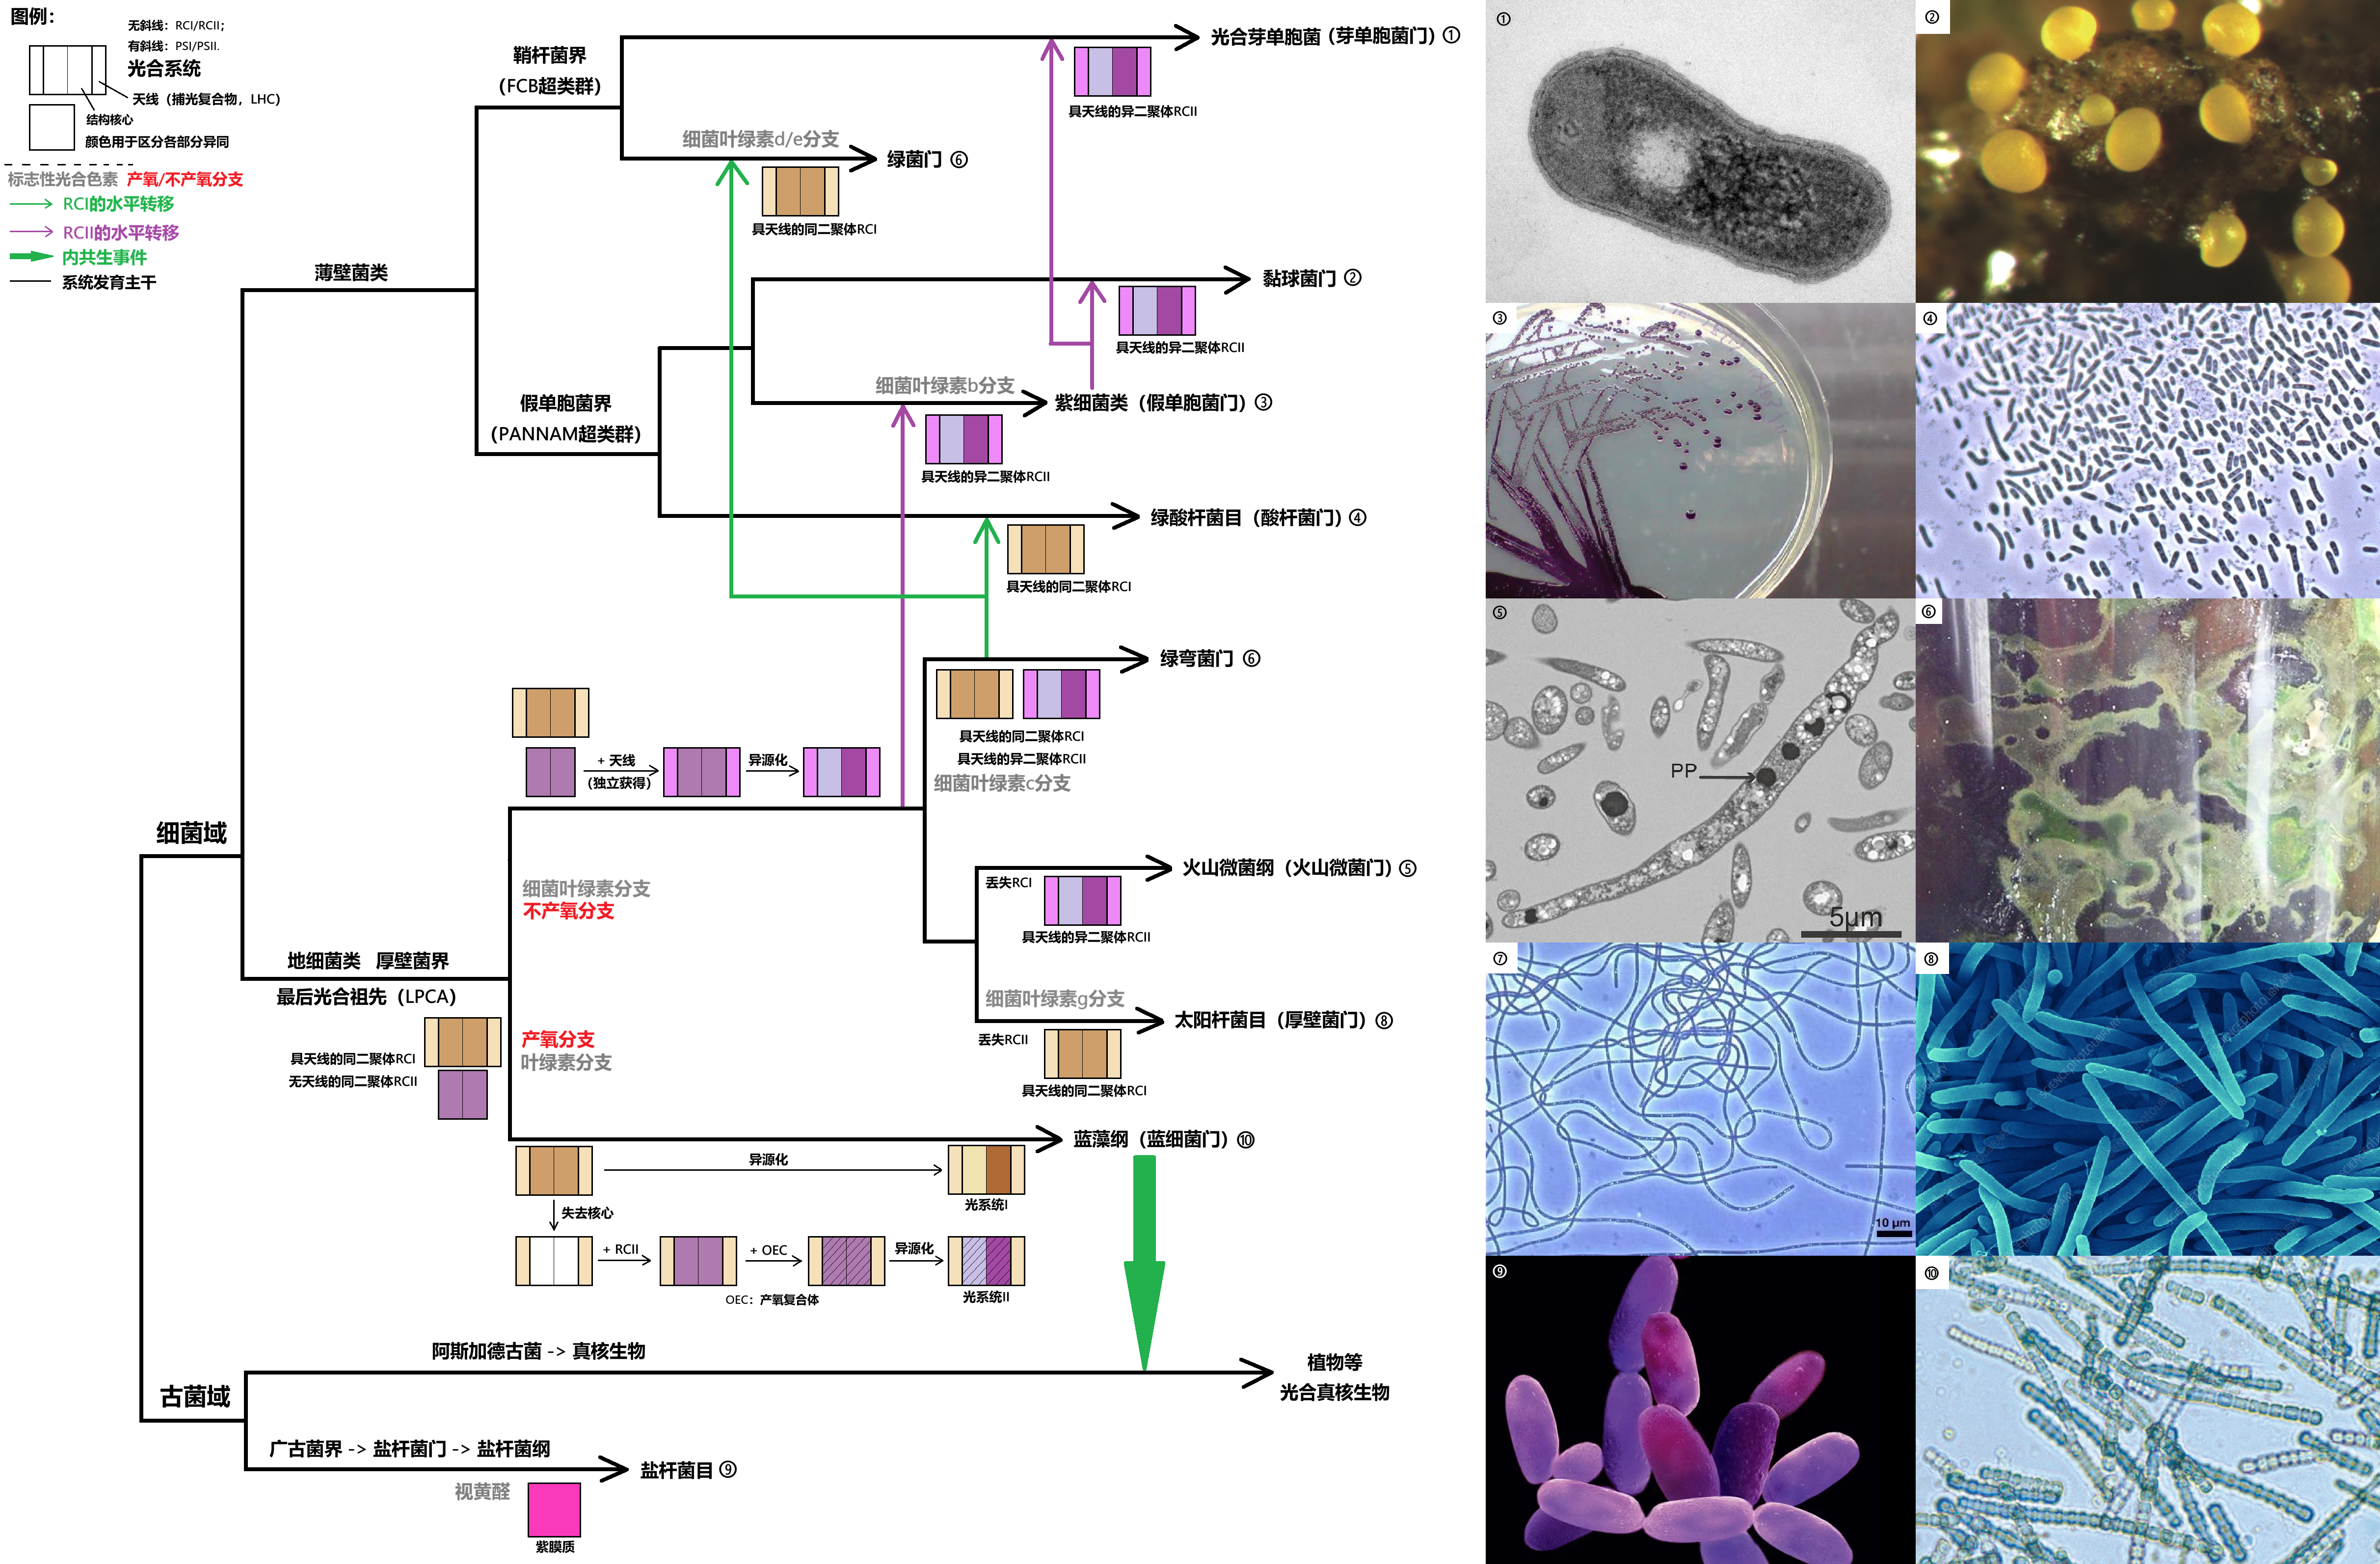
(上图:新假说下光合系统的整体演化图景(翻译自Nishihara et al., 2024),系统发育主干省略了所有非光合类群;此图信息量相当大,但结合这张图才能更好地理解下文)
稍微介绍下光合复合物的大致结构:从几何角度来说,RCI和RCII(包括后续衍生出的PSI与PSII)都是二聚体,其左右两半的结构基本是对称的;从功能角度来说,二者都可以分成外围的捕光天线与中央的核心。可以看到,LPCA的光合初号机其实是相当简单的;RCI与RCII不仅都是同二聚体(也就是说左右结构真的完全一致),甚至RCII还没有天线,只有一个孤零零的核心杵在那里。
据推测,在LPCA的年代,两套光合复合物中真正起主导作用的可能是RCI。毕竟,当时的RCII不仅没有天线,还有一个致命的副作用,就是在它工作的过程中,可能会一不小心把水给分解了,从而导致氧气的产生。虽然这一产氧反应的效率应当非常低下,但当时的光合生物也不能对此坐视不理;因此,LPCA很可能已经演化出了一些对氧气解毒的能力。这一点得到了分子生物学研究的支持,即许多与有氧呼吸相关的酶的历史都非常长,甚至远早于大氧化运动:
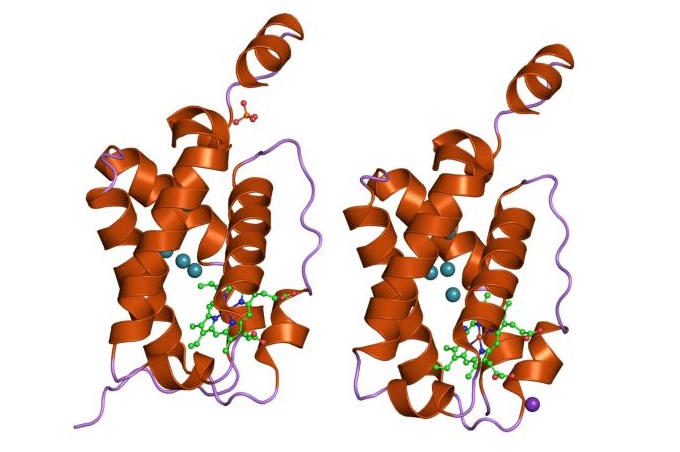
(上图:结核分枝杆菌(M. tuberculosis)中珠蛋白的三维模型(Xe饱和)。早在本世纪初,珠蛋白家族就被认为起源于早期的细菌,从系统发育上看,其至少可以追溯到LPCA,甚至更早)
于是,当LPCA的后代想要继续精进光合作用的效率时,就需要不断强化RCII的作用,从而导致更多氧气作为副产物产生,进而逼迫它们必须不断强化对氧气的耐受能力。最终,在大约33亿年前,一支名为蓝细菌的族裔率先点出了完全体的有氧呼吸,进而将氧气从砒霜化为了蜜糖;在此之后,它们开始反过来追求更多的氧气,对RCII的彻底改造也在此刻被提上了日程。
首先,它们把RCI的天线复制了一份,然后原封不动地套在RCII上,这便解决了其缺少天线的问题;接着,它们演化出了一个叫做产氧复合体(oxygen-evolving complex,OEC)的结构,镶嵌在RCII中作为裂解水的活性中心;最后,它们将RCII的左右半边进行了结构和功能上的分化,从而使其从同二聚体变成异二聚体(这一过程可称为异源化)。在这一系列改造之后,这个原本只能打辅助的光合复合物已然脱胎换骨,而它从此也有了一个更加响亮的名字——光系统II:
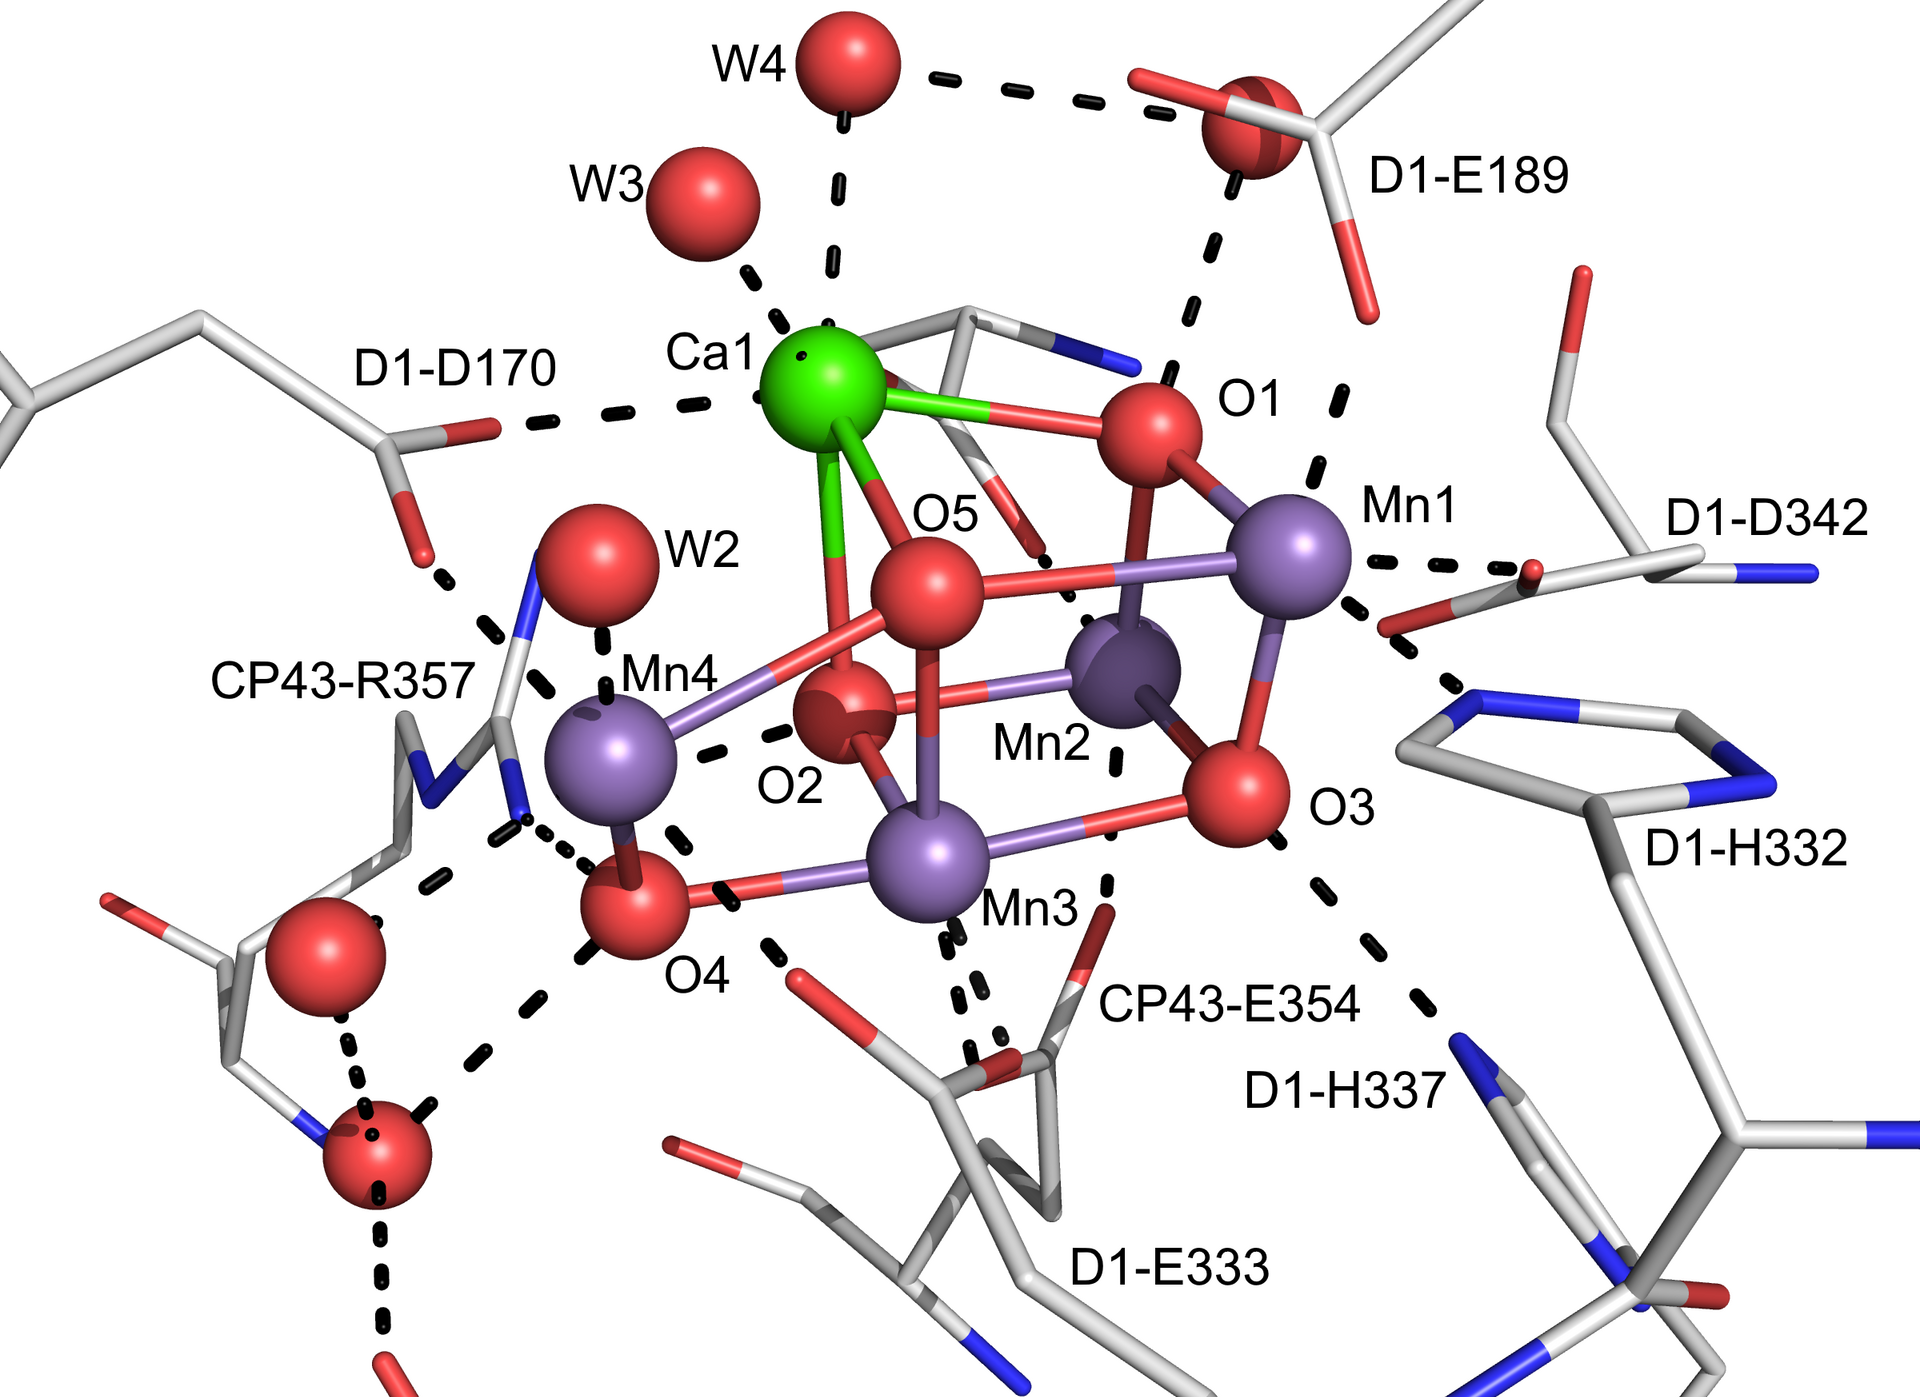
(上图:PSII中产氧复合体(OEC)的核心簇状结构(Mn₄CaO₅),基于Umena et al., 2011)
至于RCI,为了提升效率,它也被改造成了异二聚体的光系统I:
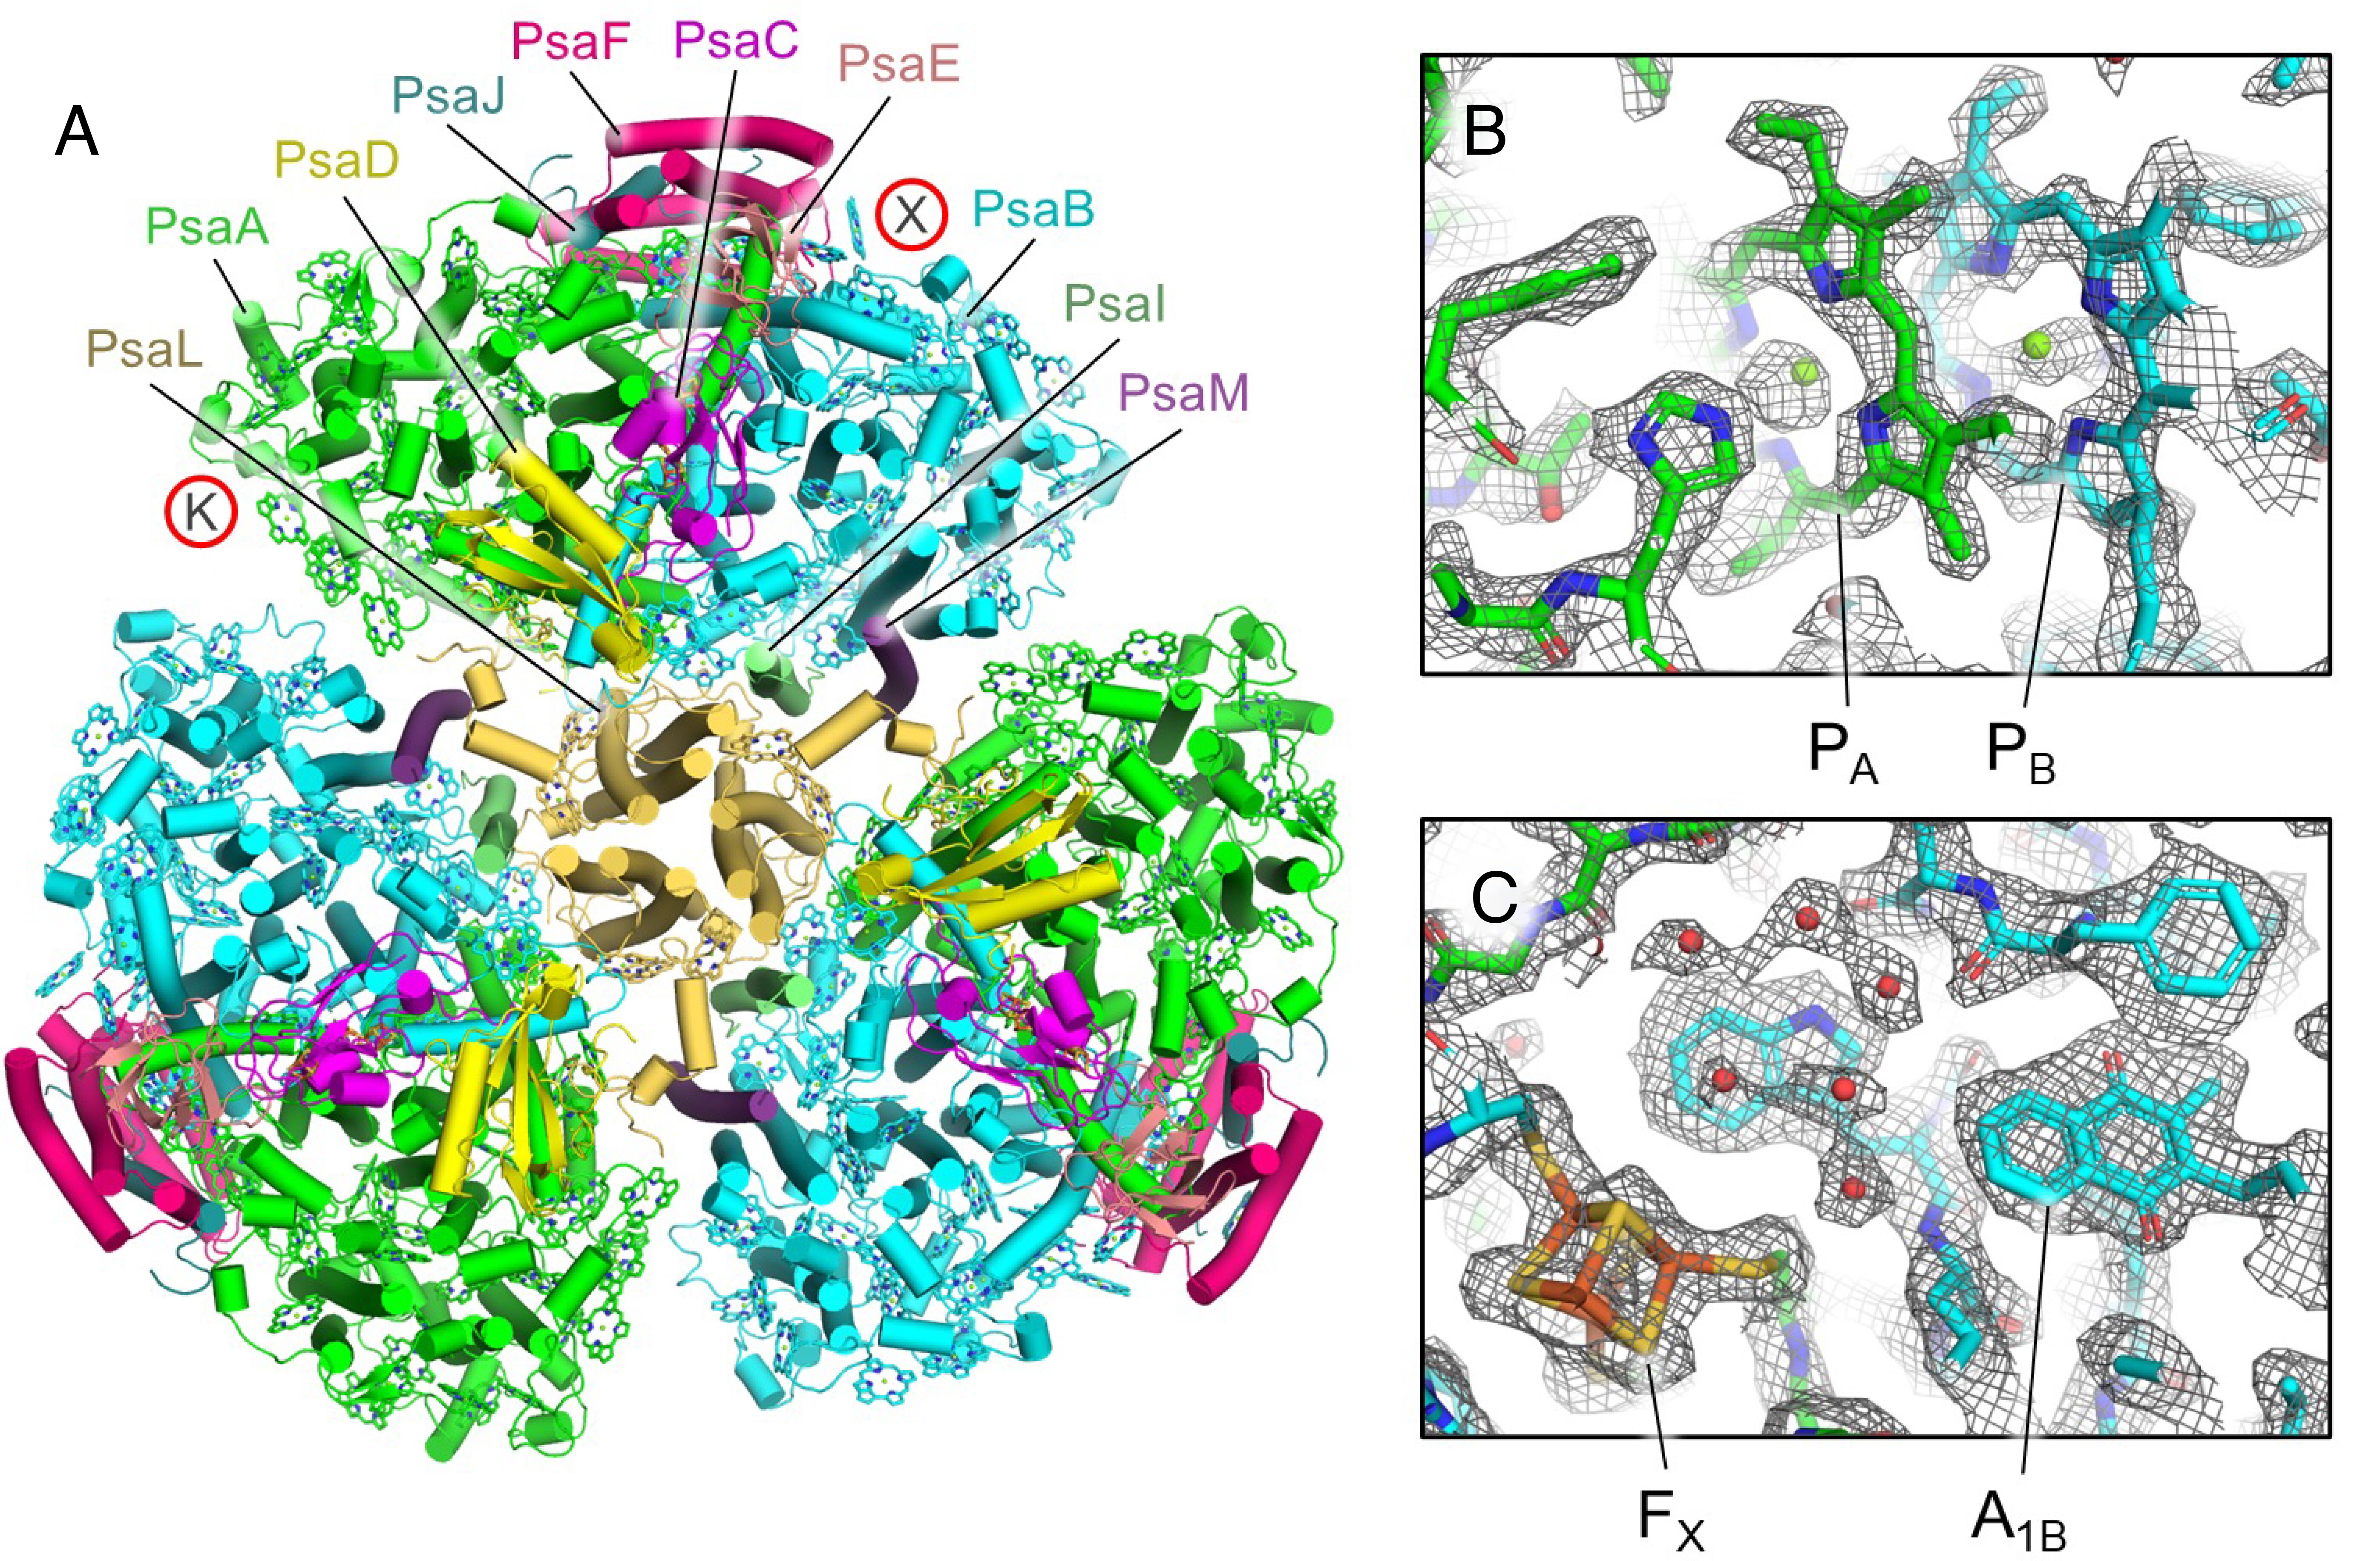
(上图:Anthocerotibacter sp.(属于胶藻菌目,蓝藻纲基干类群)中PSI的结构;B、C两图分别展示了P700和Fx附近的精细结构,基于Jiang et al., 2025)
接下来的故事大家就很熟悉了。当光系统I、光系统II和其他蛋白质在蓝藻的类囊体膜上被组装成完整的电子传递链的那一刻,一项划时代的演化创新——产氧光合作用出现了。在此之后,便是蓝藻五亿多年的卧薪尝胆,最终通过大氧化事件掀翻了整个旧世界;只不过根据这套新假说,蓝藻革命的对象并不是盐杆菌,而是上一代的非产氧光合细菌。
经此一劫,非产氧光合细菌自然是死伤惨重,以至于它们中的大多数都退化了光合作用,从此不再参与阳光的竞争。但是,总还是有一些旧时代的残党,能在尸山血海里爬上新时代的船。这些幸存者虽然无法进行有氧呼吸,但多多少少都强化了自己对氧气的解毒能力;同时,为了降本增效,它们通常都只保留一套光合系统,还学习蓝细菌搞起了异源化;另外,它们中的大多数仍在使用古老的硫代谢途径,从低价硫化物而非水中获得氢原子,以求与蓝藻拉开差异;甚至于,如太阳杆菌目(Heliobacterales)之流还额外配备了一套完整的化能合成系统,以备不时之需:
(上图:太阳杆菌属某种(Heliobacterium sp.),后期染色图片)
总之,在一系列革新与妥协之后,它们也在新时代争取到了属于自己的一席之地。如今,以紫细菌类(purple bacteria)为代表的非产氧光合细菌在各种缺氧环境中都相当常见,甚至于有些纤毛虫会将紫细菌内共生于细胞中,正如植物的远古祖先内共生了蓝细菌一样:
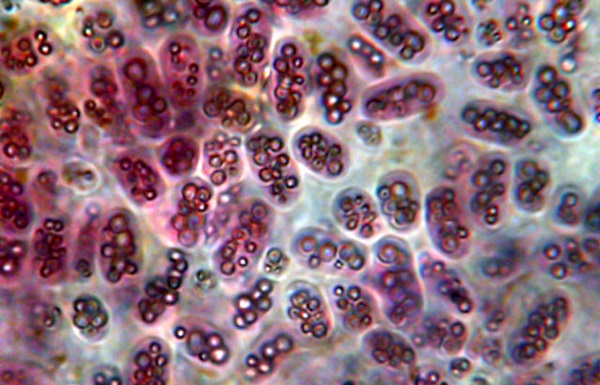
(上图:着色菌属某种(Chromatium sp.)。此处补充一点:紫细菌类是假单胞菌门(Pseudomonadota)下一系列光合细菌的通称,本身并不是一个单系群;另外,紫细菌类不属于厚壁菌界,其光合能力被认为来自水平基因转移事件)
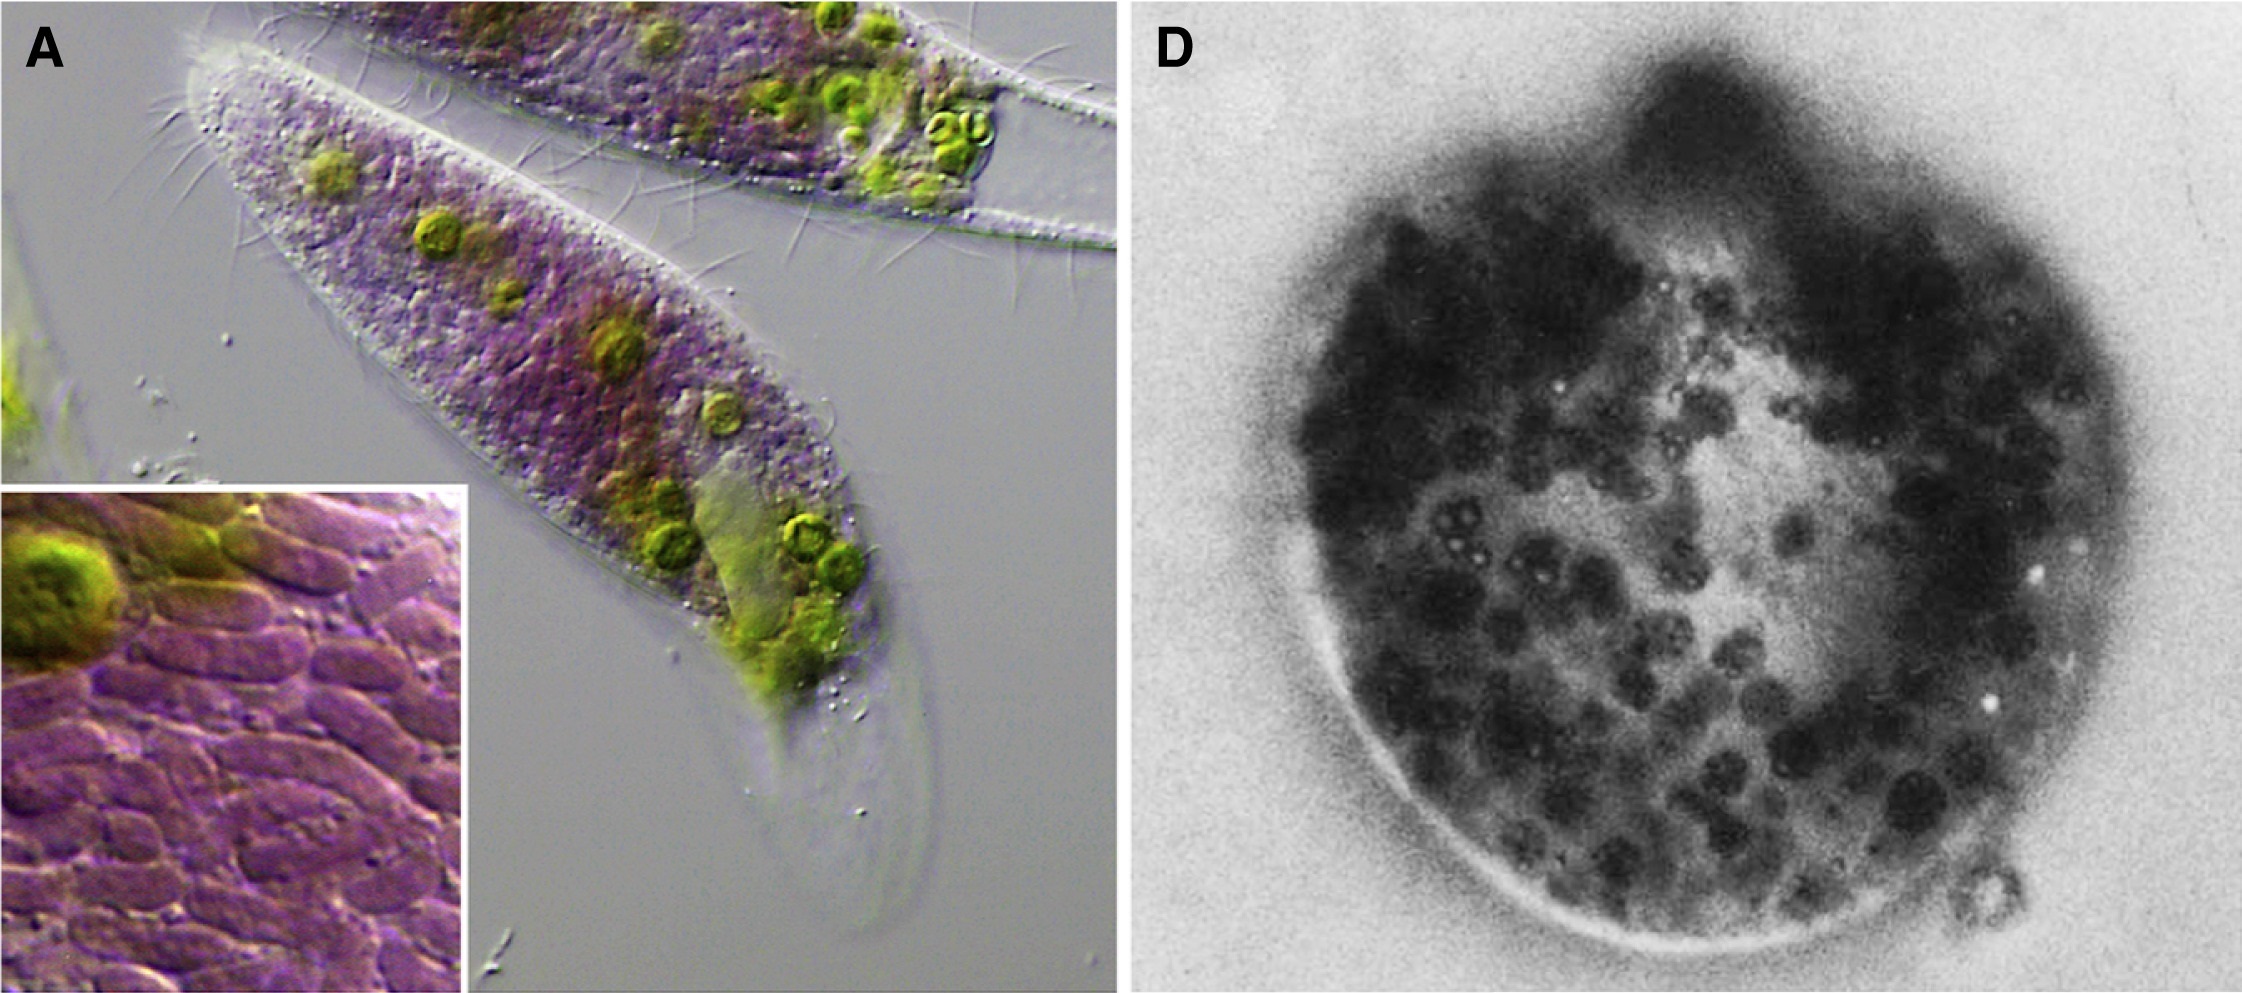
(上图:两种内共生紫细菌的纤毛虫。左:P. tenue,其同时还拥有绿藻内共生体;右:S. purpureum)
至于可怜的盐杆菌,如前文所述,它们从来都不是地球光合作用的主角;但是,当你真正理解了新的演化图景之后,又会发现它们的存在仍然是一个震撼人心的奇迹。在新假说中,这颗星球上似乎注定只有一个家族可以触碰金色的阳光;LPCA确实是伟大的先驱者,但它的出现也堵死了其他类群通往光明的道路。自此之后,一个营光合作用的生物有且只有三种可能:要么它是LPCA的直系后代,比如蓝细菌;要么它有幸接受了其他光合生物的基因转移,比如紫细菌;要么它将其他光合生物内共生于细胞中,比如植物。从自私的基因的角度,你甚至可以认为是那段诞生于37亿年前的“光合基因”垄断了这颗星球上的阳光。但就在此时,你回头看到了那片紫色的盐湖,于是你恍然大悟:LPCA或许从来都不是真正的“最后光合祖先”,因为就在那里,有一类与几乎所有同行都迥然相异的光合生物,给出了第四种可能。尽管它们的光合系统看起来是如此的简陋,但这根本无法埋没独立演化的含金量。总之,在那苦咸的盐水中奏响的,或许从来都不是紫色地球悲情的史诗,而是一个渺小的、独立的、不屈的族群高傲的长歌。
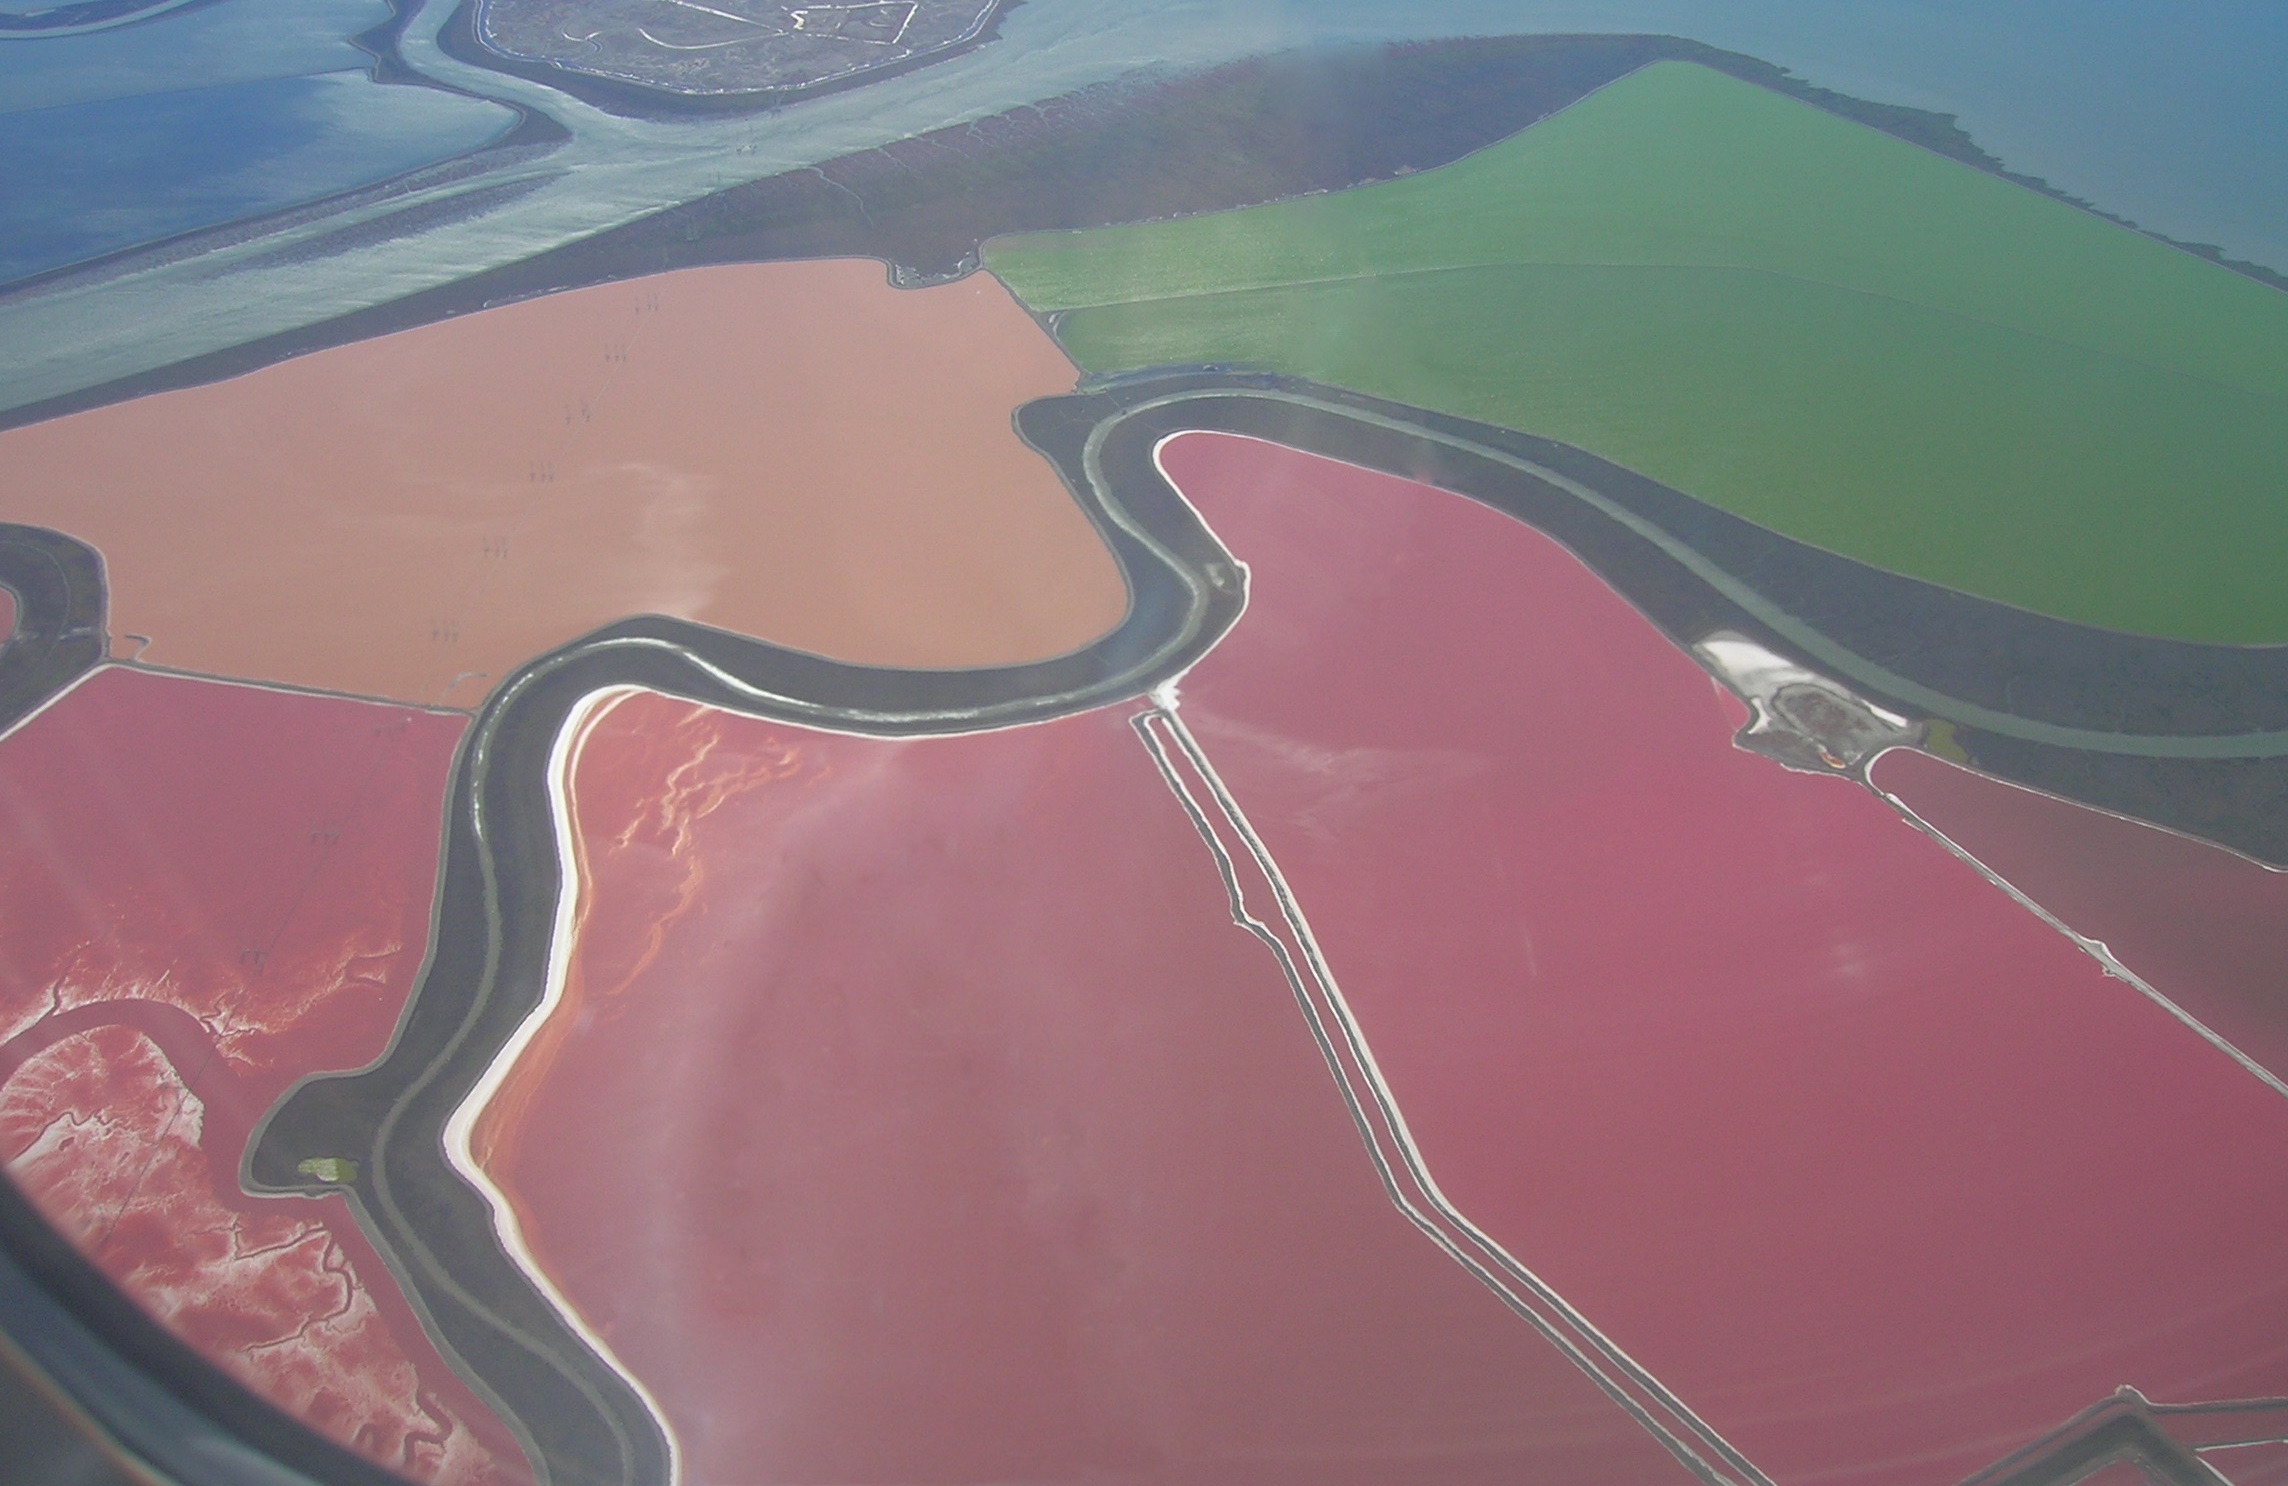
(上图:美国旧金山湾的紫红色盐湖,其颜色被认为主要是盐杆菌所致)
尾声 & 彩蛋
也许没人能说得清,这群张牙舞爪的诡异生物到底是何时出现的。至少是30亿年前吧,但也很有可能更早。
我们只知道,它们与当时的一切生物都截然不同,即使是在最简单的外表上。
另外,它们属于古菌。那个从细胞生命诞生以来,就一直不被看好的古老族裔。
可以肯定的是,它们的远祖和盐杆菌一样,很早就退化掉了祖传的产甲烷能力。为了补充代谢途径的缺失,它们开始广泛地与其他生物共生,无论是细菌还是古菌,通通来者不拒。
应该说,共生的生活方式从来都不稀奇,但接下来发生的事情······简直如同神话。
在演化中,它们居然学会了伸出触手。这些触手可以延伸几微米远,彼此之间还能相互勾连,进而编织出一张大网。利用这个技能,它们不仅可以抓住周围的生物,还能以一种诡异的姿态匍匐爬行。
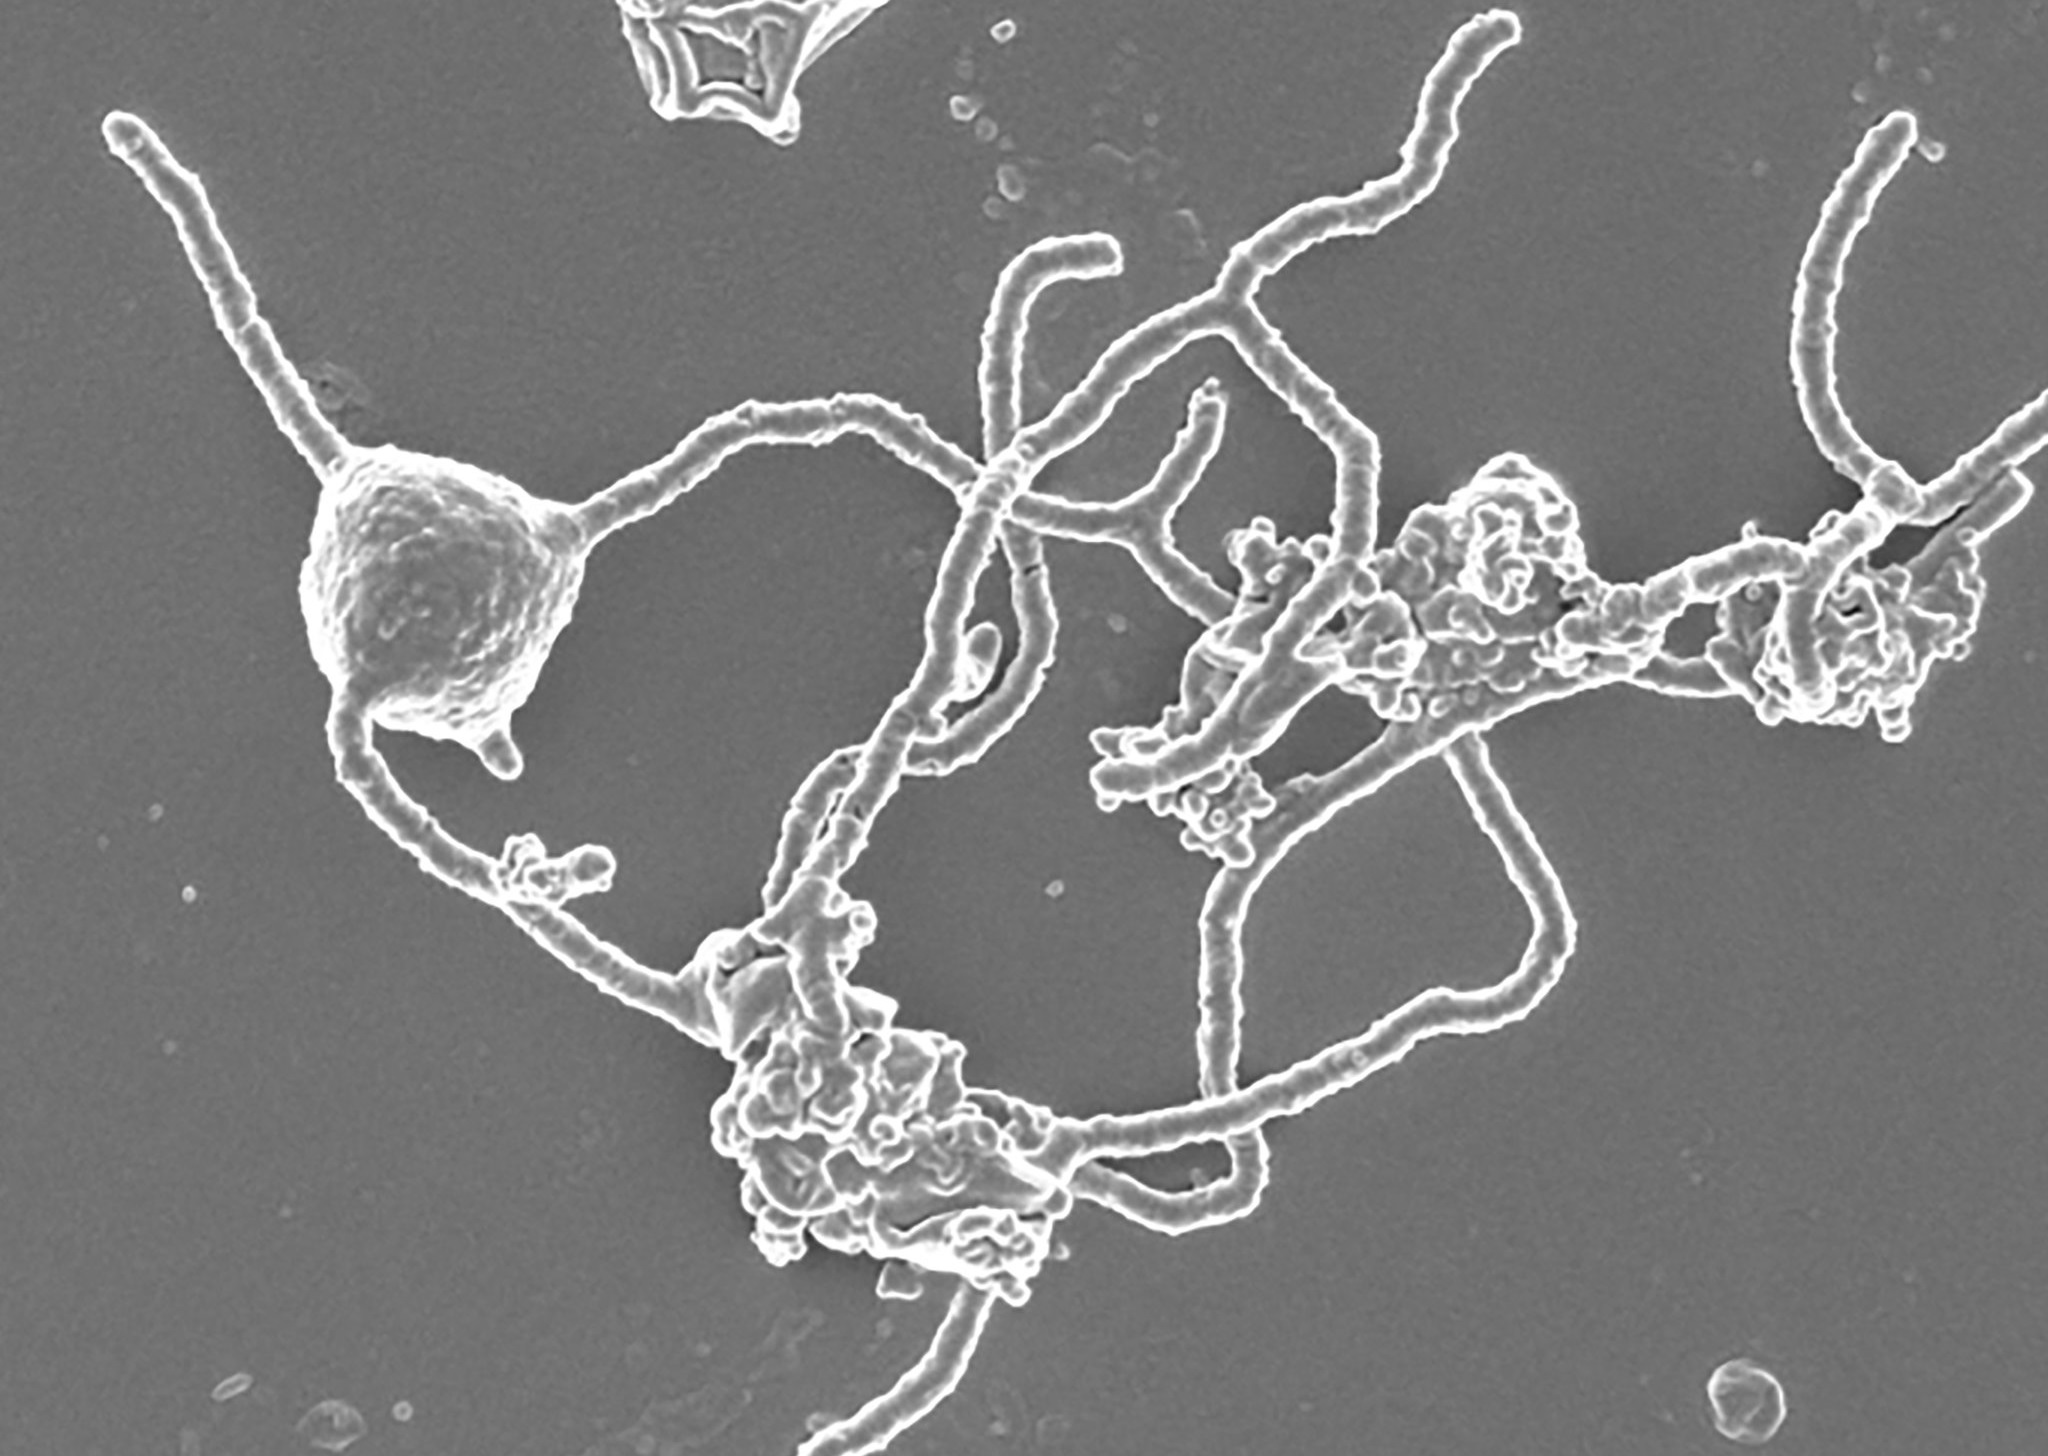
慢慢地,以它们为中心,一个个小聚落逐渐成型。聚落成员不管是自愿的,还是被强行抓过来的,都愿意奉献自己的特长,换取他人的庇护。而作为日理万机的聚落之主,它们的体型和基因组也在各种因素的影响下,变得越来越大,越来越大······
在这个地球生命的田园时代,它们走上了一条未曾设想的道路。
一开始,除了形态不可名状以外,它们似乎也并不出众;直到24.6亿年前,大氧化事件彻底摧毁了田园的美梦。
在新时代的修罗场中,大多数古菌都选择了退缩,退到其他生物都难以抵达的极端环境中,继续用古老的残躯苟活。而它们,则在自己的努力和伙伴们的拥护下,选择了留下来。它们要成为乱世中的枭雄。
为了适应无处不在的氧气,它们开始大举招募好氧菌进入自己的聚落;同时,它们还尝试用点方法来保护自己脆弱的遗传物质。结果,它们中的一支在这条路上越走越远,直到彻底改头换面,并把那个曾经与自己共生的好氧菌纳入胞中。体型巨大的它们甚至还解锁了吞噬能力,其身影所到之处,各种小生物皆抱头鼠窜。
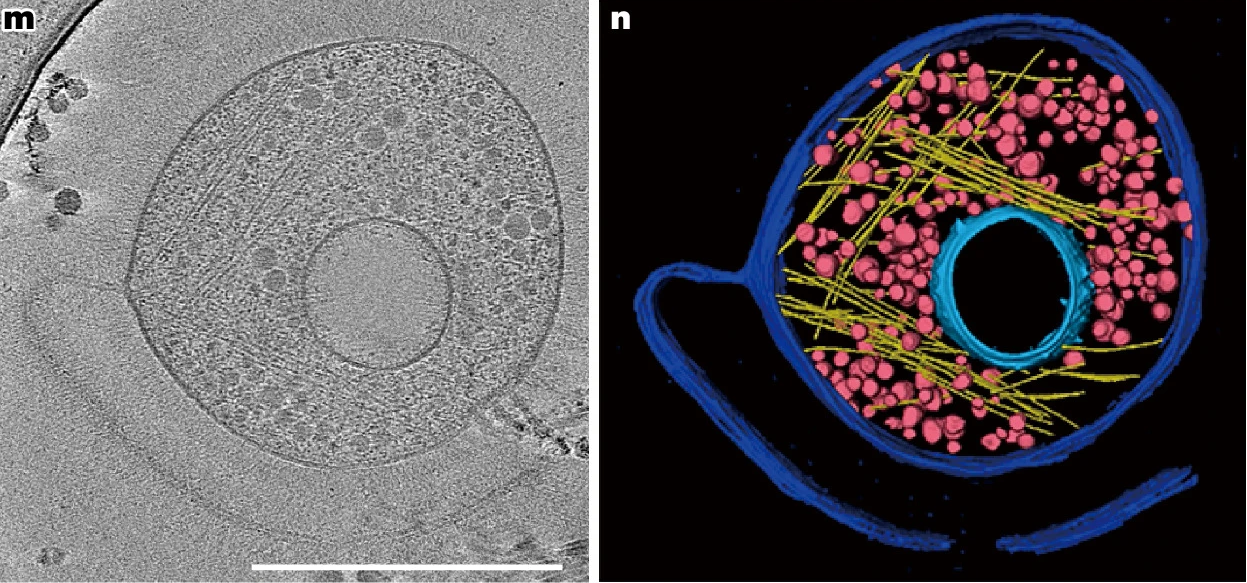
到了这一步,这支族裔已经很不像传统的古菌了(它们自己也是这么觉得的)。可是,它们的野心还不止于此。
在大氧化之后,那个名为蓝藻的家族已经垄断产氧光合作用几亿年;直到某天,它们中的一支将一种蓝藻纳入了胞内。此后经过近十亿年的筚路蓝缕,这支新生的光合谱系终于击败了不可一世的旧王,而光合演化的故事,也终于进入了下一个篇章。
“『它们』到底是谁?”
“我们就是『它们』。更确切地说,我们是『它们』的一部分。”
未完待续······
注释 & 参考文献
注释
提示:正如你所见,这篇文章讲述了许多关于早期光合演化的精彩的故事,但事实上,为了把论文中的鬼话翻译成正常人看得懂也乐意去看的语言,作者几乎耗尽了自己本就没多少的文学功底,还牺牲了不少学术上的严谨性。也正是因此,我额外写了下文的注释。如果你只是想听个故事找点乐子,那你或许不需要看下面的内容;但如果你想把这篇文章当作一个抛砖引玉,并且在此后想要继续深入了解这一领域,那下面这三点或许会对你有所帮助。
(1)在21世纪的今天,虽然我们已经有了分子系统发育学的重型武器,但探索早期生命的演化依然十分困难(毕竟时间实在是太久远了)。这种困难带来了高度的不确定性(比如经常被诟病的分子钟),而在这种条件下,曾经流行的假说被新证据推翻是一件再正常不过的事;甚至可以说,新假说也只是相对而言更契合新的证据罢了。
(2)上文中所谓“光合生物”的概念并不是严谨的,这一概念在学术上应当对应于光养生物(Phototrophs);这一术语泛指所有能够从光中获取能量并将其用于新陈代谢的生物,无论它是单纯地使用光能生产ATP,还是用光能介导固碳反应。显然,光养生物至少可以分成两个子类:光自养生物(Photoautotrophs)和光异养生物(Photoheterotrophs)。前者可以利用光能固定二氧化碳,代表性类群为蓝藻;后者只能利用光能生产ATP,一般需要依赖有机小分子作为碳源,代表性类群为盐杆菌。但是,自然界可不会接受这种简单的二分。像紫细菌、太阳杆菌这种非产氧光合细菌都能在一定程度上进行固碳,但它们不像蓝藻一样可以使用二氧化碳作为唯一的碳源,环境中的其他有机碳源对它们的生存来说是必须的。因此,你或许可以把它们看成光自养和光异养的结合体,即光混合营养生物(Photomixotrophs)。但是,这一概念是存在争议的,很多时候光混合营养生物都被直接视为光异养生物;同时,部分蓝细菌甚至真核藻类在特殊的环境条件下都可以从光自养转变为光混合营养,甚至接近纯粹的光异养,这也为概念的界定带来了困难。总而言之,目前学界对于光合生物(Photosynthetic organisms)这一词的定义,一般是光自养生物+光混合营养生物(也就是说,无论是不是必须依赖有机碳源,其必须得有固碳途径),虽然存在诸多争议。上文强行把“光合生物”的概念扩展到所有“光养生物”,主要是为了把无法固碳的盐杆菌放进这个概念里,从而方便行文;如果排除光异养生物的话,那LPCA作为光合生物的共同祖先似乎没有太大的问题。
(3)上文中刻意回避了一点:盐杆菌并不是唯一的光异养生物。实际上,新近的研究表明,有很多原核生物(比如弧菌纲、黄杆菌纲、海神古菌纲和假单胞菌门的某些成员)都使用类似盐杆菌的方法进行光异养行为。这些生物普遍使用一种被称为变形紫红质(Proteorhodopsin)的光能质子泵,而这类蛋白在结构、功能等方面都与紫膜质高度类似,表明二者在演化上可能有相同的起源(二者同属古老的微生物视紫红质(Microbial rhodopsin)家族)。因此,放在更大的背景下,盐杆菌其实代表了一大类紫色的光异养生物;它们遍布于地球生命演化树的各个角落,预示着光异养能力的起源也其实相当早。从这个角度看,紫色地球假说依然有很多可取之处。在我看来,该假说的精髓其实是“以微生物视紫红质为核心的早期光营养系统”,而不是“紫色光合者被绿色光合者取代”;事实上,光异养和真正的光合作用分别由不同的蛋白质家族介导,二者的演化是平行却又密不可分的。总之,如果要考虑这些彼此之间亲缘关系极远的光异养生物,那整个演化图景都会变得相当复杂,难以良好地表述,这也是上文中只着重描写了盐杆菌的原因。
最后,如果您是研究此方面的专业人士,发现文章中有过时或者错误的观点,那请务必在评论或者私信中指出。不胜感谢!
参考文献
[1] Sparks W B, DasSarma S, Reid I N. Evolutionary competition between primitive photosynthetic systems: Existence of an early purple Earth?[C]//American Astronomical Society Meeting Abstracts. 2006, 209: 06.05.
[2] DasSarma S. Extreme microbes: salt-loving microorganisms are helping biologists understand the unifying features of life and molecular secrets of survival under extreme conditions[J]. American Scientist, 2007, 95(3): 224-232.
[3] DasSarma S, Schwieterman E W. Early evolution of purple retinal pigments on Earth and implications for exoplanet biosignatures[J]. International Journal of Astrobiology, 2021, 20(3): 241-250.
[4] Koonin E V, Martin W. On the origin of genomes and cells within inorganic compartments[J]. TRENDS in Genetics, 2005, 21(12): 647-654.
[5] Salditt A, Karr L, Salibi E, et al. Ribozyme-mediated RNA synthesis and replication in a model Hadean microenvironment[J]. Nature Communications, 2023, 14(1): 1495.
[6] Moody E R R, Álvarez-Carretero S, Mahendrarajah T A, et al. The nature of the last universal common ancestor and its impact on the early Earth system[J]. Nature Ecology & Evolution, 2024, 8(9): 1654-1666.
[7] Huang W C, Dombrowski N, Mahendrarajah T A, et al. Phylogenetic reconciliation supports a methanogenic ancestor of the Archaea and a derived origin for host-associated lineages[J]. Nature Communications, 2026, 17(1): 8337.
[8] Deppenmeier U. The unique biochemistry of methanogenesis[J]. 2002.
[9] Lyu Z, Shao N, Akinyemi T, et al. Methanogenesis[J]. Current Biology, 2018, 28(13): R727-R732.
[10] Thauer R K. The Wolfe cycle comes full circle[J]. Proceedings of the National Academy of Sciences, 2012, 109(38): 15084-15085.
[11] Ernst O P, Lodowski D T, Elstner M, et al. Microbial and animal rhodopsins: structures, functions, and molecular mechanisms[J]. Chemical reviews, 2013, 114(1): 126.
[12] Kirk R G, Ginzburg M. Ultrastructure of two species of halobacterium[J]. Journal of Ultrastructure Research, 1972, 41(1-2): 80-94.
[13] The Halohandbook: Protocols for haloarchaeal genetics, Version 7.2, 2009, https://haloarchaea.com/wp-content/uploads/2018/10/Halohandbook_2009_v7.3mds.pdf
[14] Korenaga J. Was there land on the early Earth?[J]. Life, 2021, 11(11): 1142.
[15] Beraldi-Campesi H. Early life on land and the first terrestrial ecosystems[J]. Ecological Processes, 2013, 2(1): 1.
[16] Jabłońska J, Tawfik D S. The evolution of oxygen-utilizing enzymes suggests early biosphere oxygenation[J]. Nature ecology & evolution, 2021, 5(4): 442-448.
[17] Fournier G P, Moore K R, Rangel L T, et al. The Archean origin of oxygenic photosynthesis and extant cyanobacterial lineages[J]. Proceedings of the Royal Society B: Biological Sciences, 2021, 288(1959): 20210675.
[18] Oliver T, Sánchez-Baracaldo P, Larkum A W, et al. Time-resolved comparative molecular evolution of oxygenic photosynthesis[J]. Biochimica et Biophysica Acta (BBA)-Bioenergetics, 2021, 1862(6): 148400.
[19] Oliver T, Kim T D, Trinugroho J P, et al. The evolution and evolvability of photosystem II[J]. Annual Review of Plant Biology, 2023, 74(1): 225-257.
[20] Davín A A, Woodcroft B J, Soo R M, et al. A geological timescale for bacterial evolution and oxygen adaptation[J]. Science, 2025, 388(6742): eadp1853.
[21] Nishihara A, Tsukatani Y, Azai C, et al. Illuminating the coevolution of photosynthesis and Bacteria[J]. Proceedings of the National Academy of Sciences, 2024, 121(25): e2322120121.
[26] Planavsky N J, Asael D, Hofmann A, et al. Evidence for oxygenic photosynthesis half a billion years before the Great Oxidation Event[J]. Nature Geoscience, 2014, 7(4): 283-286.
[27] Soo R M, Hemp J, Parks D H, et al. On the origins of oxygenic photosynthesis and aerobic respiration in Cyanobacteria[J]. Science, 2017, 355(6332): 1436-1440.
[28] Microbial mats: modern and ancient microorganisms in stratified systems[M]. Springer Science & Business Media, 2010.
[29] Gumsley A P, Chamberlain K R, Bleeker W, et al. Timing and tempo of the Great Oxidation Event[J]. Proceedings of the National Academy of Sciences, 2017, 114(8): 1811-1816.
[30] Beaud Benyahia B, Taib N, Beloin C, et al. Terrabacteria: redefining bacterial envelope diversity, biogenesis and evolution[J]. Nature Reviews Microbiology, 2025, 23(1): 41-56.
[31] Battistuzzi F U, Hedges S B. A major clade of prokaryotes with ancient adaptations to life on land[J]. Molecular biology and evolution, 2009, 26(2): 335-343.
[32] Kay C J, Spang A, Szöllősi G J, et al. Dated gene duplications elucidate the evolutionary assembly of eukaryotes[J]. Nature, 2026, 650(8100): 129-140.
[33] Zhu L R, Mao Y L, Hu Y, et al. Genome-based taxonomy of the family Haloarculaceae, proposal of Natronomonadaceae fam. nov., and description of four novel halophilic archaea from two saline lakes and a marine solar saltern[J]. Systematic and Applied Microbiology, 2025, 48(3): 126592.
[34] Cui L, Hu Y, Li X X, et al. Halobacterium yunchengense sp. nov., Natronomonas amylolytica sp. nov., Halorientalis halophila sp. nov., Halobellus salinisoli sp. nov., halophilic archaea isolated from a saline lake and inland saline soil[J]. Extremophiles, 2024, 28(2): 28.
[35] Kurucz S, Fralick P, Homann M, et al. Earth’s first snowball event: Evidence from the early Paleoproterozoic Huronian Supergroup[J]. Precambrian Research, 2021, 365: 106408.
[36] Duran-Viseras A, Sanchez-Porro C, Viver T, et al. Discovery of the streamlined haloarchaeon Halorutilus salinus, comprising a new order widespread in hypersaline environments across the world[J]. Msystems, 2023, 8(2): e01198-22.
[37] Cui H L, Hou J, Amoozegar M A, et al. Proposed minimal standards for description of new taxa of the class Halobacteria[J]. International Journal of Systematic and Evolutionary Microbiology, 2024, 74(3): 006290.
[38] Gutiérrez-Preciado A, Dede B, Baker B A, et al. Extremely acidic proteomes and metabolic flexibility in bacteria and highly diversified archaea thriving in geothermal chaotropic brines[J]. Nature ecology & evolution, 2024, 8(10): 1856-1869.
[39] Baker B A, Gutiérrez-Preciado A, Rodriguez del Rio A, et al. Expanded phylogeny of extremely halophilic archaea shows multiple independent adaptations to hypersaline environments[J]. Nature Microbiology, 2024, 9(4): 964-975.
[40] Martijn J, Schön M E, Lind A E, et al. Hikarchaeia demonstrate an intermediate stage in the methanogen-to-halophile transition[J]. Nature communications, 2020, 11(1): 5490.
[41] Cardona T, Sánchez‐Baracaldo P, Rutherford A W, et al. Early Archean origin of photosystem II[J]. Geobiology, 2019, 17(2): 127-150.
[42] Sousa F L, Shavit-Grievink L, Allen J F, et al. Chlorophyll biosynthesis gene evolution indicates photosystem gene duplication, not photosystem merger, at the origin of oxygenic photosynthesis[J]. Genome biology and evolution, 2013, 5(1): 200-216.
[43] Saini M K, Kuzyk S B, Villena-Alemany C, et al. Chloracidobacterium validum sp. nov., a thermophilic chlorophotoheterotrophic bacterium of the phylum Acidobacteriota from an alkaline hot spring microbial mat, represents Chloracidobacterium gen. nov., Chloracidobacteriaceae fam. nov. and Chloracidobacteriales ord. nov[J]. International Journal of Systematic and Evolutionary Microbiology, 2026, 76(1): 007003.
[44] Li L, Huang D, Hu Y, et al. Globally distributed Myxococcota with photosynthesis gene clusters illuminate the origin and evolution of a potentially chimeric lifestyle[J]. Nature Communications, 2023, 14(1): 6450.
[45] Yabe S, Muto K, Abe K, et al. Vulcanimicrobium alpinus gen. nov. sp. nov., the first cultivated representative of the candidate phylum “Eremiobacterota”, is a metabolically versatile aerobic anoxygenic phototroph[J]. ISME communications, 2022, 2(1): 120.
[46] Zeng Y, Selyanin V, Lukeš M, et al. Characterization of the microaerophilic, bacteriochlorophyll a-containing bacterium Gemmatimonas phototrophica sp. nov., and emended descriptions of the genus Gemmatimonas and Gemmatimonas aurantiaca[J]. International journal of systematic and evolutionary microbiology, 2015, 65(Pt_8): 2410-2419.
[47] Hashimi A, Tocheva E I. Cell envelope diversity and evolution across the bacterial tree of life[J]. Nature microbiology, 2024, 9(10): 2475-2487.
[48] Leng H, Wang Y, Zhao W, et al. Identification of a deep-branching thermophilic clade sheds light on early bacterial evolution[J]. Nature Communications, 2023, 14(1): 4354.
[49] Tsuji J M, Shaw N A, Nagashima S, et al. Anoxygenic phototroph of the Chloroflexota uses a type I reaction centre[J]. Nature, 2024, 627(8005): 915-922.
[50] Vinogradov S N, Hoogewijs D, Bailly X, et al. A model of globin evolution[J]. Gene, 2007, 398(1-2): 132-142.
[51] 川上恵典, 沈建仁. Crystal structure of oxygen-evolving photosystem II at 1.9 A resolution[J]. Nature 473, 2011: 55-60.
[52] Jiang H W, Gisriel C J, Cardona T, et al. Structure and evolution of photosystem I in the early-branching cyanobacterium Anthocerotibacter panamensis[J]. Proceedings of the National Academy of Sciences, 2025, 122(20): e2427090122.
[53] Muñoz-Gómez S A, Hess S. Purple photosymbioses[J]. Current Biology, 2023, 33(5): R167-R170.
[54] BERNARD C, FENCHEL T O M. Chemosensory behaviour of Strombidium purpureum, an anaerobic oligotrich with endosymbiotic purple non‐sulphur bacteria[J]. Journal of Eukaryotic Microbiology, 1994, 41(4): 391-396.
[55] Muñoz-Gómez S A, Kreutz M, Hess S. A microbial eukaryote with a unique combination of purple bacteria and green algae as endosymbionts[J]. Science Advances, 2021, 7(24): eabg4102.
[56] Muñoz-Gómez S A, Sørensen M E S, Shazib S U A, et al. Evolutionary assembly of a unique purple-green photosymbiosis revealed by expanded ciliate diversity[J]. The ISME Journal, 2026, 20(1): wrag142.
[57] Sánchez‐Baracaldo P, Cardona T. On the origin of oxygenic photosynthesis and Cyanobacteria[J]. New Phytologist, 2020, 225(4): 1440-1446.
[58] Bryant D A, Frigaard N U. Prokaryotic photosynthesis and phototrophy illuminated[J]. Trends in microbiology, 2006, 14(11): 488-496.
[59] Pinhassi J, DeLong E F, Béjà O, et al. Marine bacterial and archaeal ion-pumping rhodopsins: genetic diversity, physiology, and ecology[J]. Microbiology and Molecular Biology Reviews, 2016, 80(4): 929-954.
[60] Pereira O, Hochart C, Boeuf D, et al. Seasonality of archaeal proteorhodopsin and associated marine group IIb ecotypes (Ca. Poseidoniales) in the North Western Mediterranean Sea[J]. The ISME Journal, 2021, 15(5): 1302-1316.
[61] Tang K H, Feng X, Zhuang W Q, et al. Carbon flow of heliobacteria is related more to clostridia than to the green sulfur bacteria[J]. Journal of Biological Chemistry, 2010, 285(45): 35104-35112.
[62] Sephus C D, Fer E, Garcia A K, et al. Earliest photic zone niches probed by ancestral microbial rhodopsins[J]. Molecular Biology and Evolution, 2022, 39(5): msac100.